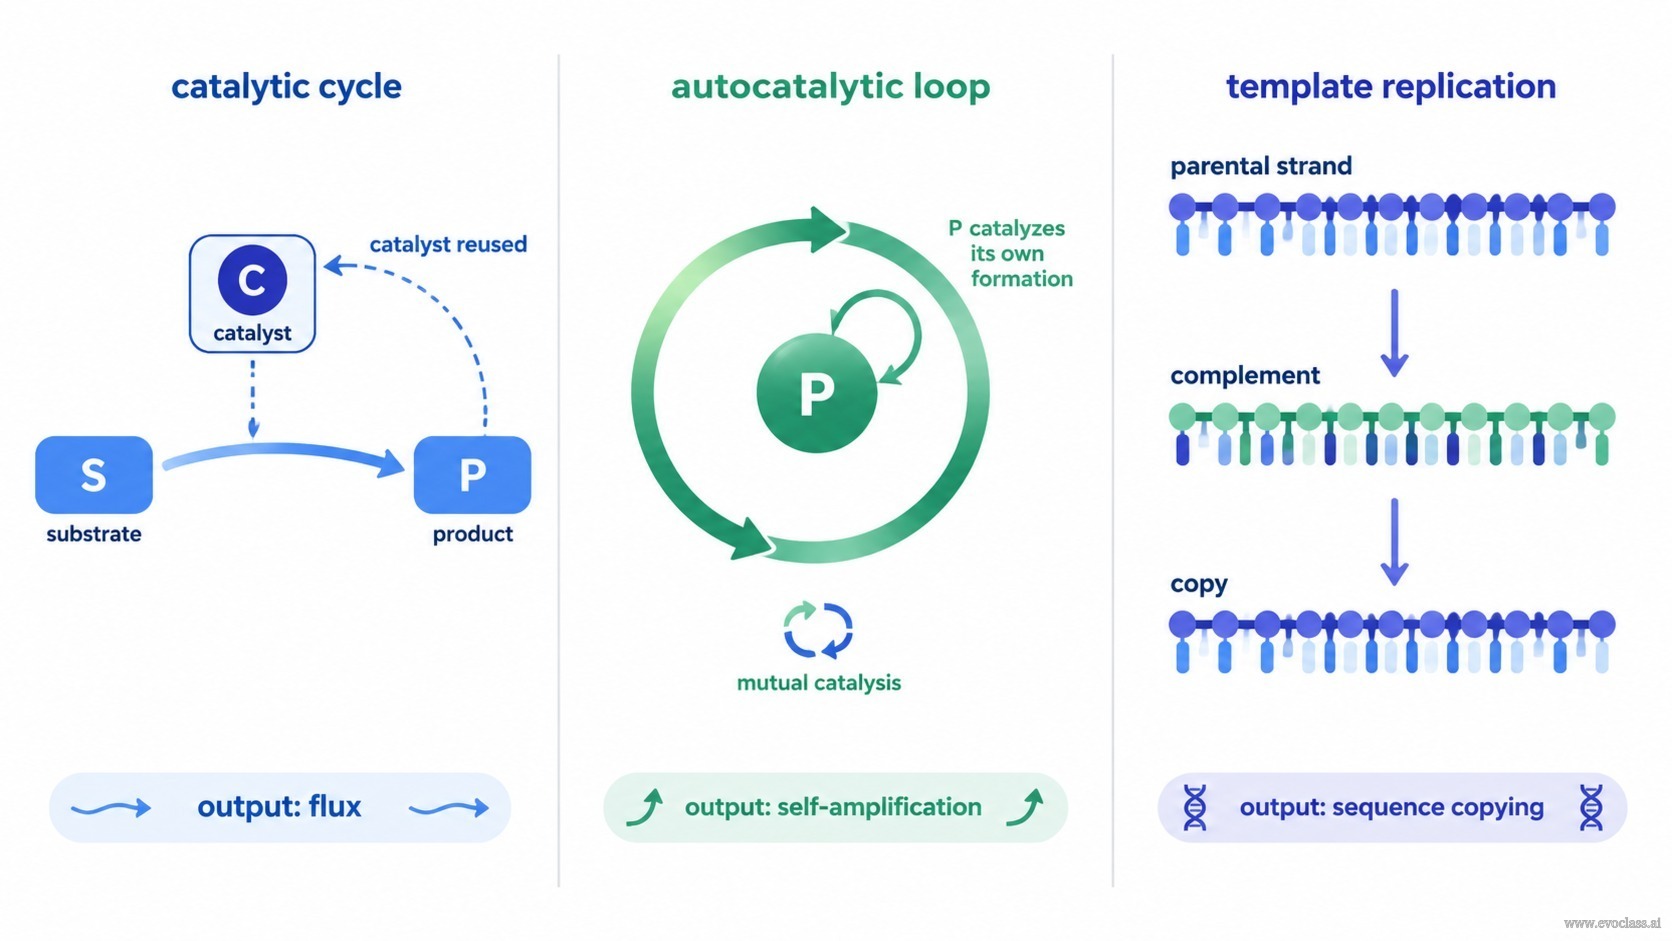
超循环理论区分了三种常被混为一谈、但作用迥异的分子模式: 简单催化循环,它们产生的是 通量; 自催化单元,它们产生的是 自我放大;以及 自复制模板,它们产生的是 可遗传的序列拷贝。超循环需要三种行为同时存在,而将它们混淆会导致化学无法支持的论断——例如,把仅仅加速反应的催化剂当作已经在自我复制。
1. 简单催化循环:无自我放大的偶联通量
催化循环利用一种或多种催化剂将底物转化为产物。关键在于该循环 不 输出什么:催化剂本身。催化剂被重复使用,但并非作为该循环的必需产物被复制,因此必须从外部供给,或通过其他过程再生。这类循环能轻易建立稳态通量和偶联反应网络,但本质上并不自我放大:若催化剂被稀释或降解,除非循环持续获得供给,其浓度就会下降。酶的周转,以及催化底物转化却未被该反应再生的核酶,都属于这一模式的例子。
2. 自催化单元:对单元自身的正反馈
自催化单元产生的产物会催化其自身的生成,因此其决定性特征是对单元自身生产的正反馈。这带来自我放大,并能在前体充足时支持指数式增长。自催化可以是 直接的,即分子催化其自身的合成;也可以是 集体的,即一组分子相互催化。至关重要的是,仅凭自催化并不能保证忠实的序列复制:单元可以在不传递特定序列的情况下放大,因此自我放大并不等同于遗传。
3. 自复制模板:复制序列信息
自复制模板以自身为模板,指导互补链的合成。由于直接产物是互补链而非完全相同的拷贝,要再生原始序列通常需要第二轮反应,由互补链充当模板。因此,模板复制在机制上不同于催化循环:模板指导的聚合复制序列信息,催化循环转化底物,而自催化回路放大产物。只有模板模式所携带的信息,其长度受到复制保真度和错误阈值的限制。
为何这一区分对超循环至关重要
这三种模式是超循环组织的基石。催化循环提供组分之间的功能偶联;自催化单元提供增长;模板提供必须保持在错误阈值以下的可遗传信息。原始翻译装置无法仅凭一个短小的自复制单元组装而成——它需要偶联、增长与信息的整合,这正是超循环被提出作为自然自组织单元的原因。
边界警示
在真实的分子系统中,这些类别存在重叠:模板也可能具有催化活性,自催化集合也可能包含模板指导的步骤。这一区分是分析性的——用于判定某一步骤作出何种贡献——并非关于互斥自然类别的断言。
催化循环三个面板按各自的“特征输出”比较了超循环理论所区分的模式。左:简单催化循环将底物 S 转化为产物 P,而催化剂 C 被重复使用而非被复制,因此输出是稳态通量。中:自催化回路中产物 P 催化其自身的生成,因此输出是单元自身的增多(自我放大),无论是通过直接的自催化还是集体的相互催化。右:亲代链指导互补链的合成,互补链继而指导原始链拷贝的合成,因此输出是被复制的序列信息。