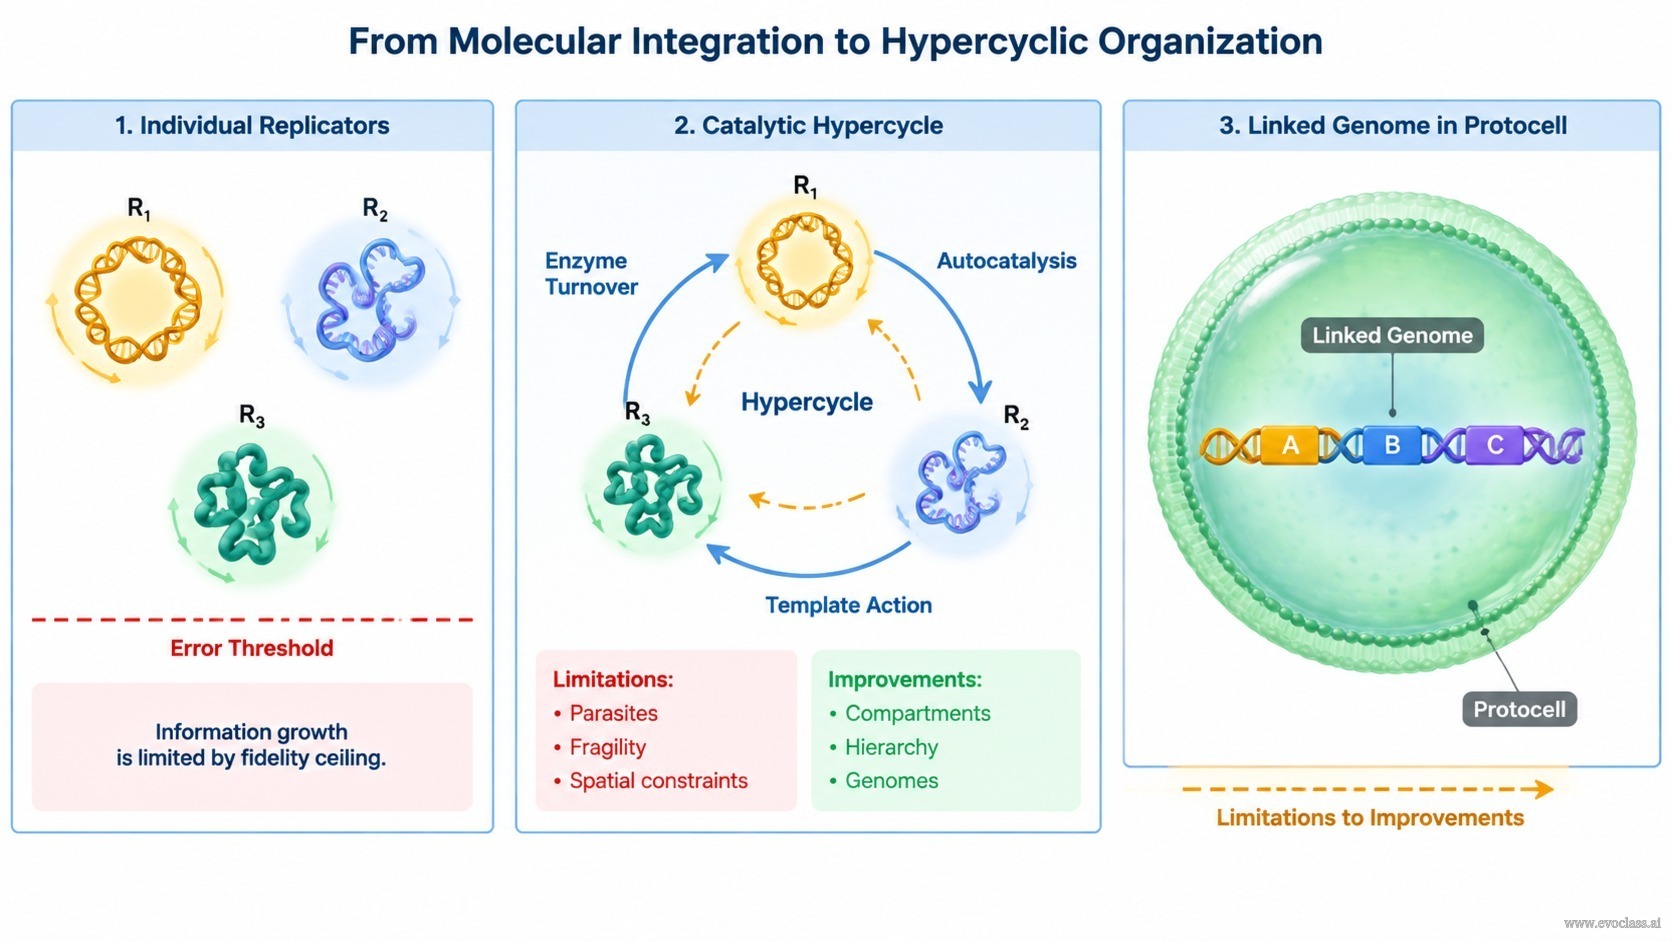
这张幻灯片展示了早期分子演化中的一个决定性转变:当单个自我复制单元无法再承载足够的信息时,选择会倾向于 多个自我复制实体的整合。其原因在于 误差阈值。复制子的复制保真度决定了序列在对抗突变衰退时所能维持的长度上限。超过该上限后,在单个单元中产生更多信息反而会适得其反,因为大多数拷贝都是错误的,主序列随之丢失。
超循环组织 通过将多个自我复制单元耦合成一个闭合的、协同的催化网络来解决这一限制。在该网络中,每个单元通过催化循环、自催化、模板作用和酶周转来支持其他单元的复制。成为选择单位的是这个集体,而非任何单个分子,即 选择单位。因此,功能整合起初并不要求基因在物理上连接起来;它只要求其催化产物能够反馈到网络成员的复制过程中。
为何功能耦合先于结构整合
在基因组以连锁结构形式存在之前,选择可以作用于一组通过催化方式合作的复制子。超循环将独立的竞争者转变为协同网络,从而能够维持比任何单个成员更多的集体信息。这也可能为早期翻译相关功能提供一条路径,因为多个类 RNA 单元可以贡献不同的催化或编码角色,而无需任何单个单元超出其保真度上限。
从功能整合到结构整合
随着基因组演化,功能耦合可以被基因的完全结构整合所取代。即便已知最原始细胞的基因组也是结构单元。结构连锁使合作集合成为一个单一的可遗传实体,降低了对可扩散催化耦合的依赖,并能保护合作基因免于丢失或被单独利用。
突变谱论证
一个核心问题是:为何要采用许多单突变基因的超循环组织,而不是一个持续增长的基因组。对于一组 100 个基因,k 错突变体的数量为
局限与改进
超循环组织并非最终解决方案。它可能是间接的、动态脆弱的、易受寄生或自私复制子侵袭的,并依赖于空间或区室约束。改进方向包括区室化、层级化超循环以及最终结构性基因组的形成。这些变化稳定了合作并减少了对可扩散催化耦合的依赖。
要点: 超循环是自然界自组织的一条中间原理:它通过催化合作把自我复制单元连接起来,使一个集体能够维持超出任何单个复制子上限的信息,并为结构整合的基因组铺平道路。
从分子整合到超循环组织阶段 1 显示了受保真度上限约束的单个自我复制单元;阶段 2 显示了由催化循环、自催化、模板作用和酶周转形成的闭合超循环网络;阶段 3 显示了在原始细胞中功能耦合被结构连锁的基因组所取代,其中虚线琥珀色箭头标示了局限与稳定化改进。