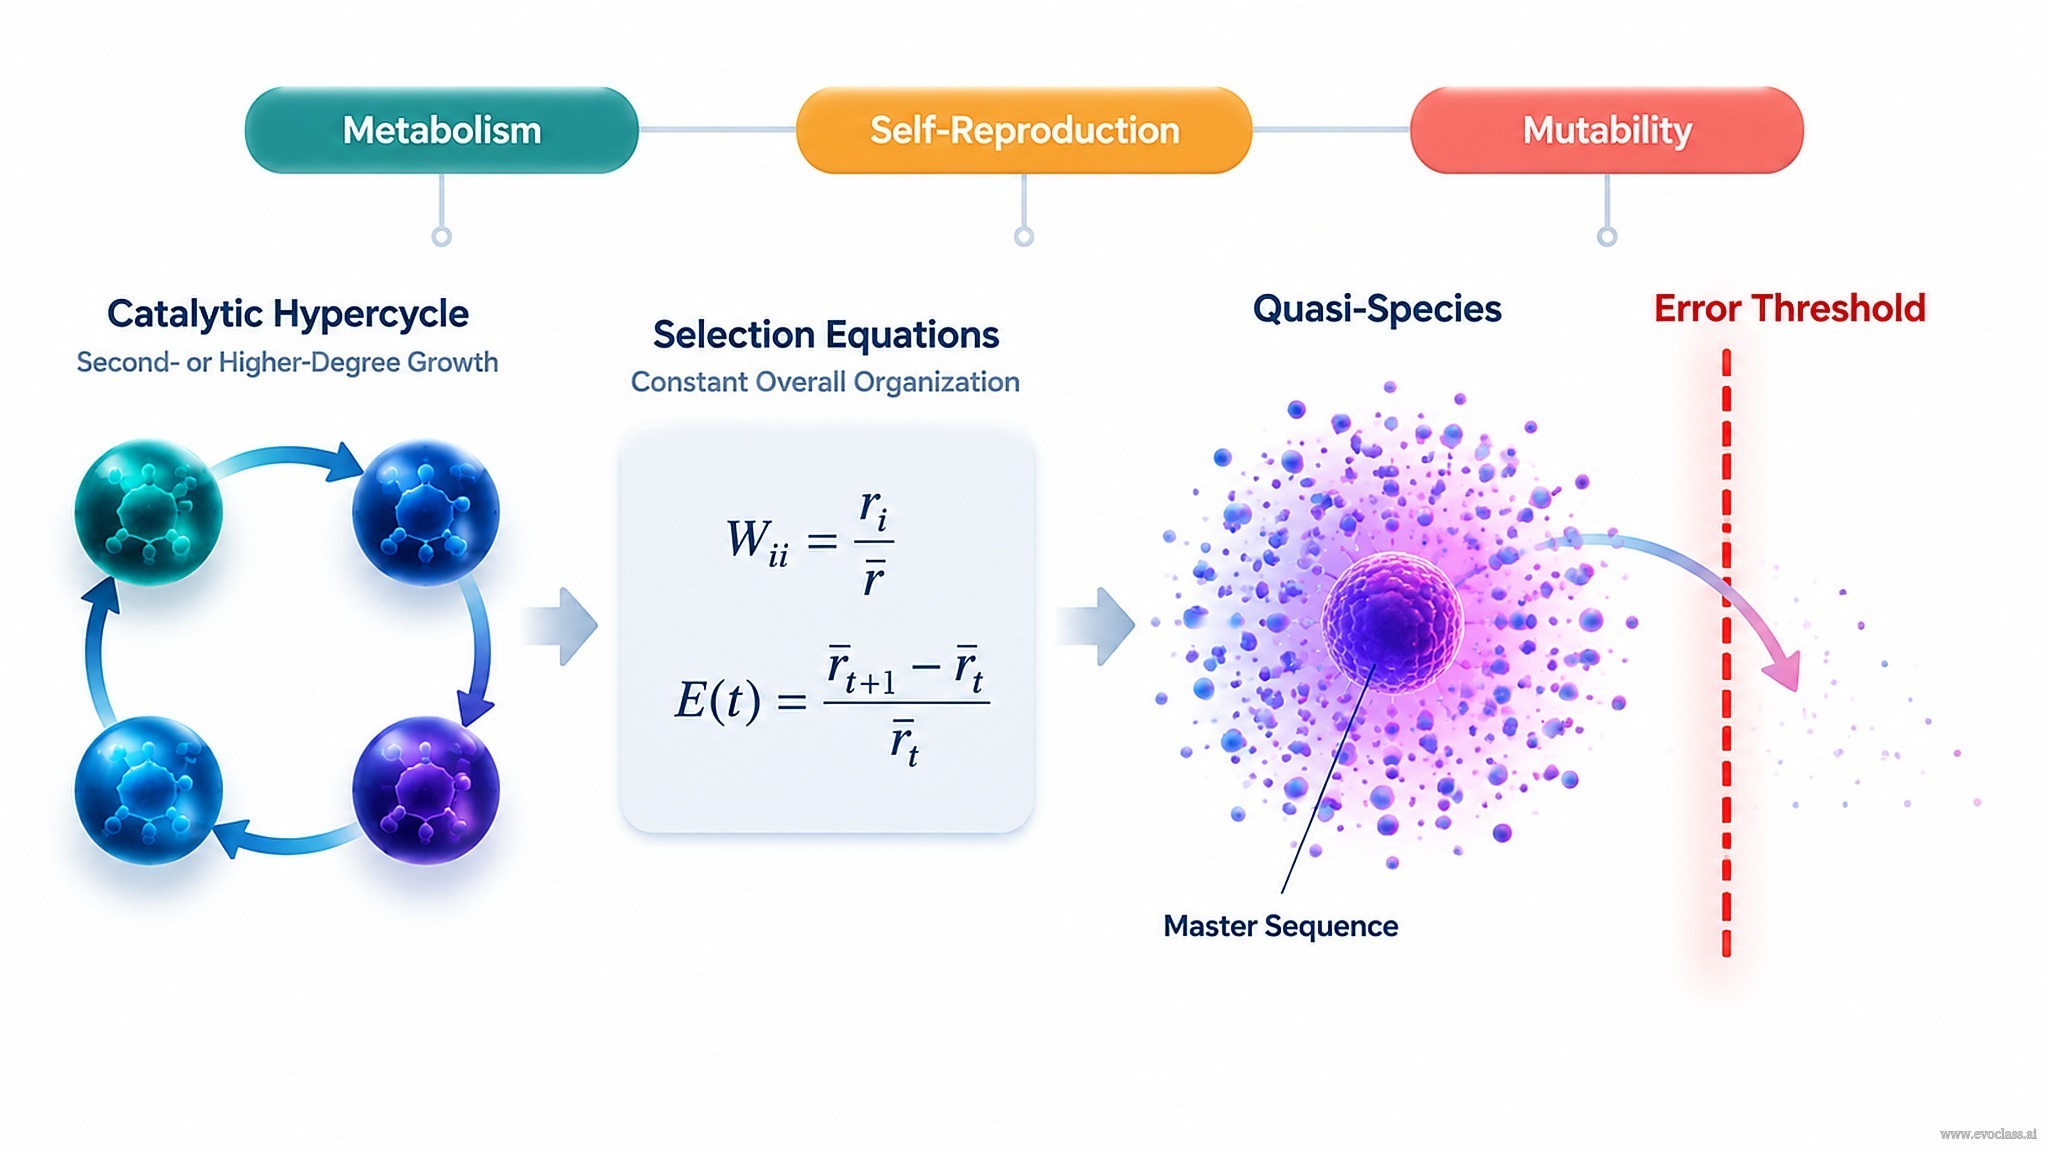
本课以一个生命起源理论的核心问题开篇:一组自我复制的分子如何在没有现成细胞机制的情况下产生 分子选择 ?本课给出的答案是 催化超循环:一种自我复制单元之间的环状联结,其中每个单元的复制都由循环中的另一个成员提供催化支持。其结果是集体自组织,而非一群独立的复制子的简单集合。
三种增长组织
- 单纯催化增长:外部催化剂促进模板的复制,但该催化剂本身并非由同一环路产生。其增长规律不具备自放大性。
- 自催化增长:分子催化自身或其同类分子的复制。其增长率包含一个与复制子浓度一次方成正比的项——即一次自放大。
- 超循环增长:复制被组织为一个闭合循环 A → B → C → … → A。由于每个成员都是在另一个成员的催化下产生的,整体增长取决于至少两个浓度的乘积。这正是催化超循环属于 二次或更高次系统的原因。
这一区分至关重要,因为只有超循环组织才能将自我复制与能够支持分子层面选择的集体非线性动力学耦合起来。
达尔文前提
要实现分子选择,必须满足三个条件:
- 代谢:提供自由能与物质来源,使有组织状态得以维持并远离平衡。
- 自我繁殖:单元具备增殖能力,使有利的变异体能够在数量上增加。
- 可变异性:可遗传的变异,没有它选择便无从谈起。
这三个前提是边界条件:它们本身并不规定定量动力学,但它们界定了达尔文式描述具有意义的适用范围。
总体组织恒定条件下的选择方程
当复制子的总浓度保持不变时,频率
其中 Wii 是 选择值 即复制子类型 i 的选择值,包含其复制率与降解率。 E(t) 是 平均超额生产力,即选择值的群体加权平均。当一个类型的 W_ii 超过 E(t) 时,其频率上升;低于 E(t) 时,频率下降。总体组织恒定的条件使选择成为一种相对比较,而非绝对增长竞赛。
突变-选择平衡与准物种
真实的复制过程容易出现错误。突变-选择平衡不会产生单一占优势的野生型序列;相反,它产生一个 准物种,即以主序列为中心、有组织的突变序列分布。因此,野生型只是相关序列云中最可能的成员,而非选择的唯一目标。当主序列的选择优势与其偏离方向的突变通量相平衡时,该分布便趋于稳定。
误差阈值
只有当每次复制的突变率足够低时,准物种才能持续存在。一旦超过 误差阈值,主序列便无法可靠地传递其信息,突变云随之离域化,有组织的分布崩塌为突变随机化状态。这限制了超循环或准物种能够可重复维持的信息量。开篇的路线图——催化循环 → 选择方程 → 准物种 → 误差阈值——由此将分子自组织与分子层面达尔文演化的根本信息上限联系起来。
边界条件
代谢、自我繁殖与可变异性是前提,而非可有可无的标签。只要有其中任何一项缺失,即便化学循环仍在运转,选择方程也失去了其达尔文式含义。
催化超循环路线图闭合的催化超循环引出包含选择值 Wᵢᵢ 与平均超额生产力 E(t) 的选择方程,进而引出准物种云与误差阈值屏障。达尔文三前提——代谢、自我繁殖与可变异性——构成了从分子自组织向分子选择过渡的框架。
催化超循环路线图
闭合的催化超循环引出包含选择值 Wᵢᵢ 与平均超额生产力 E(t) 的选择方程,进而引出准物种云与误差阈值屏障。达尔文三前提——代谢、自我繁殖与可变异性——构成了从分子自组织向分子选择过渡的框架。