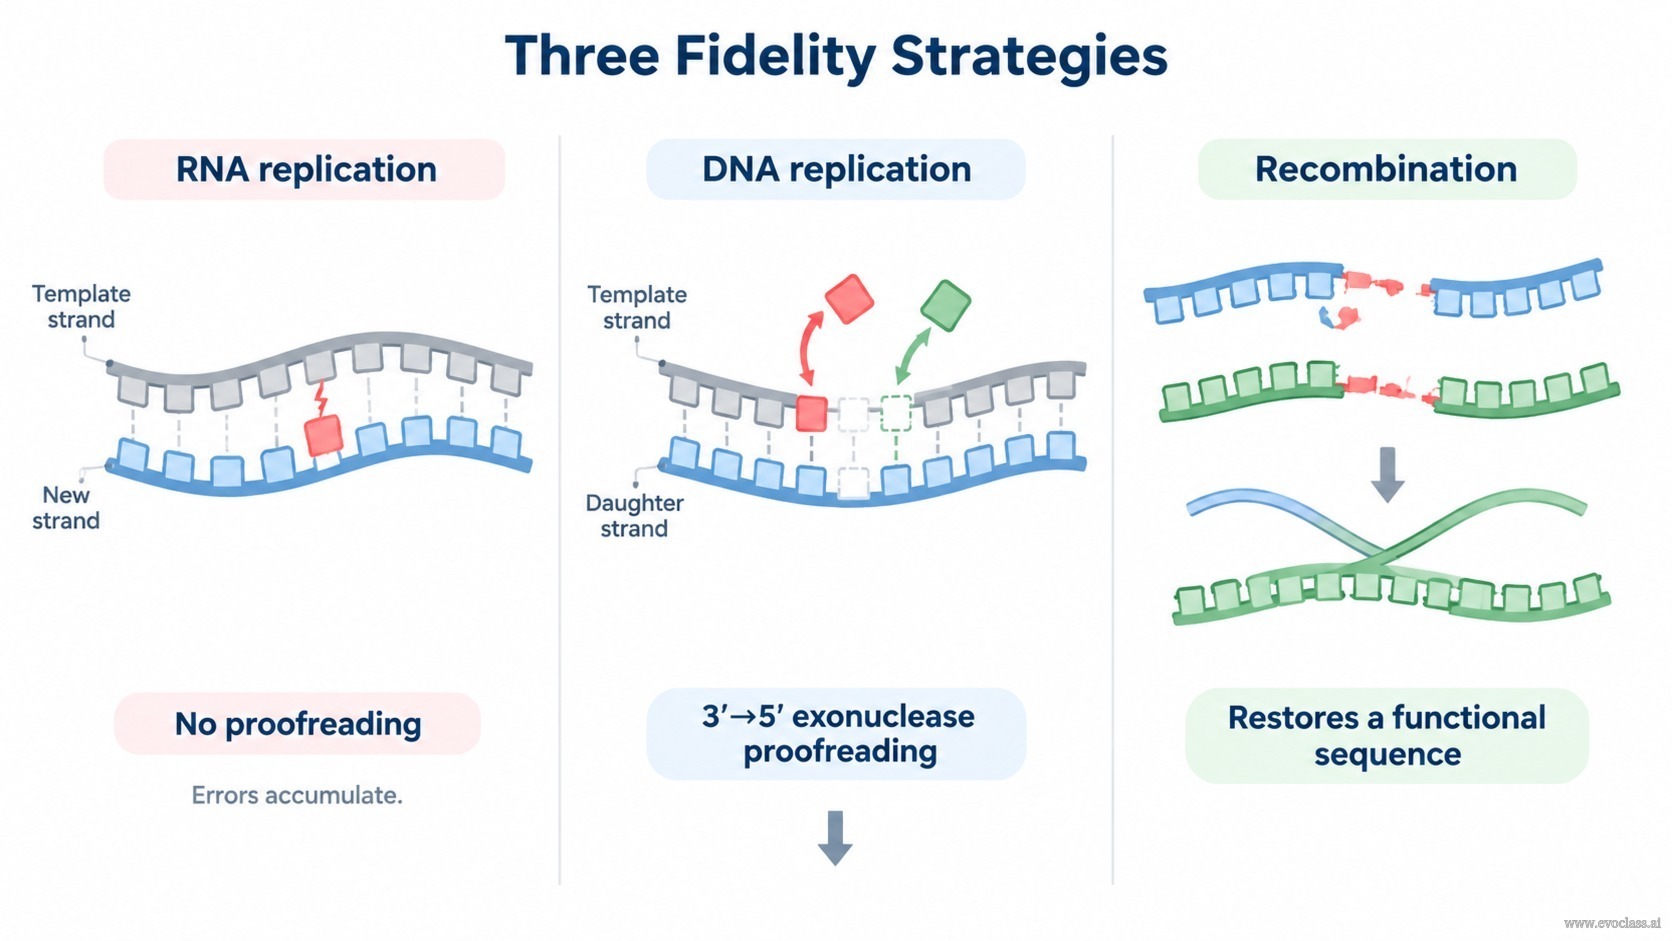
三种不同的策略决定了复制子能够保留多少信息:RNA 复制本身的保真度、DNA 复制所添加的核酸外切酶校正,以及在模板和种群层面而非单个碱基对层面编辑信息的重组。它们共同决定了有效突变率——进而决定错误阈值的位置,以及准物种能够保持多高的稳定性。
RNA 复制:无校正的快速拷贝
RNA 复制酶通常不具备 3′→5′ 核酸外切酶结构域,只能延伸正在合成的链。因此,被错误掺入的核苷酸既不会被识别也不会被移除:复制是一个单一、非编辑式的合成步骤,错误被带入子链。其结果是每碱基错误率很高,大约每复制 10⁴ 个碱基出现 1 个错误。由于无差错后代的占比随基因组长度增加而衰减,长基因组无法维持,因此 RNA 基因组保持紧凑,并接近错误阈值。Qβ 噬菌体的诱变实验正是这一状态的例证:种群并非呈现为单一、清晰的野生型序列,而是以主序列为中心、呈广泛分布的突变云。
DNA 复制:校正换来基因组长度
DNA 聚合酶通常带有 3′→5′ 核酸外切酶活性,可对新添加的 3′ 末端进行检查。一旦检测到错配,该酶便会反向移动,在延伸继续之前水解掉错误的核苷酸,从而移除错误并插入正确的碱基。校正机制叠加在碱基配对选择性之上,使错误率下降两到三个数量级。用错误阈值的语言来说,更高的每碱基准确度 q 会提高选择所能维持的最大基因组:由 νmax ≈ ln σm ⁄ (1 − q) 可知,更小的错误率 (1 − q) 放宽了限制,允许更大的基因组稳定遗传。失去校正能力的 DNA 聚合酶核酸外切酶突变体,恰好表现出预期中的突变率升高和有效基因组大小的降低。
重组:模板层面的修复与重配
重组并不会改善聚合酶活性位点的碱基配对,它的作用对象是模板和种群。同源重组可以从两个受损方式不同的模板中重建完整序列;模板转换可以挽救停滞或错误堆积的拷贝;重配则能将有益变异组合到同一背景中,同时清除有害变异。重组的收益取决于共感染、可用的同源性和选择强度,因此从准物种的角度看,重组改变的是有效突变负荷以及种群层面的突变—选择平衡,而非每碱基错误率本身。
错误阈值与准物种的后果
RNA 的高错误率限制了 νmax,使种群保持在错误阈值附近;DNA 校正降低了错误率,放宽了这一限制;重组可以减少有效突变负荷或重新产生适应性序列,从而改变选择所作用的变异分布。由此可直接得出比较原则:RNA 保真度有利于快速变异和紧凑信息,DNA 校正有利于基因组扩张和稳定遗传,重组有利于种群层面的修复和模块化创新。这些是互补策略,而非相互排斥,真实的复制子会以不同比例将它们结合起来。
比较原则。 RNA 保真度:快速变异、基因组紧凑、错误负荷高。DNA 校正:错误率低若干数量级、νmax 提高、大基因组可稳定遗传。重组:碱基配对准确度不变,但实现种群层面的修复、重配和有害变异清除。
三种保真策略左:RNA 复制插入了一个错配碱基,由于缺乏校正,该错误被留在子链中,因此每碱基错误率保持在高位。中:DNA 聚合酶的 3′→5′ 核酸外切酶切除错配的 3′ 核苷酸并插入正确的核苷酸,使错误率下降若干数量级。右:重组将两个受损方式不同的模板连接起来,恢复功能性序列,在种群层面而非单个碱基对层面修复信息。