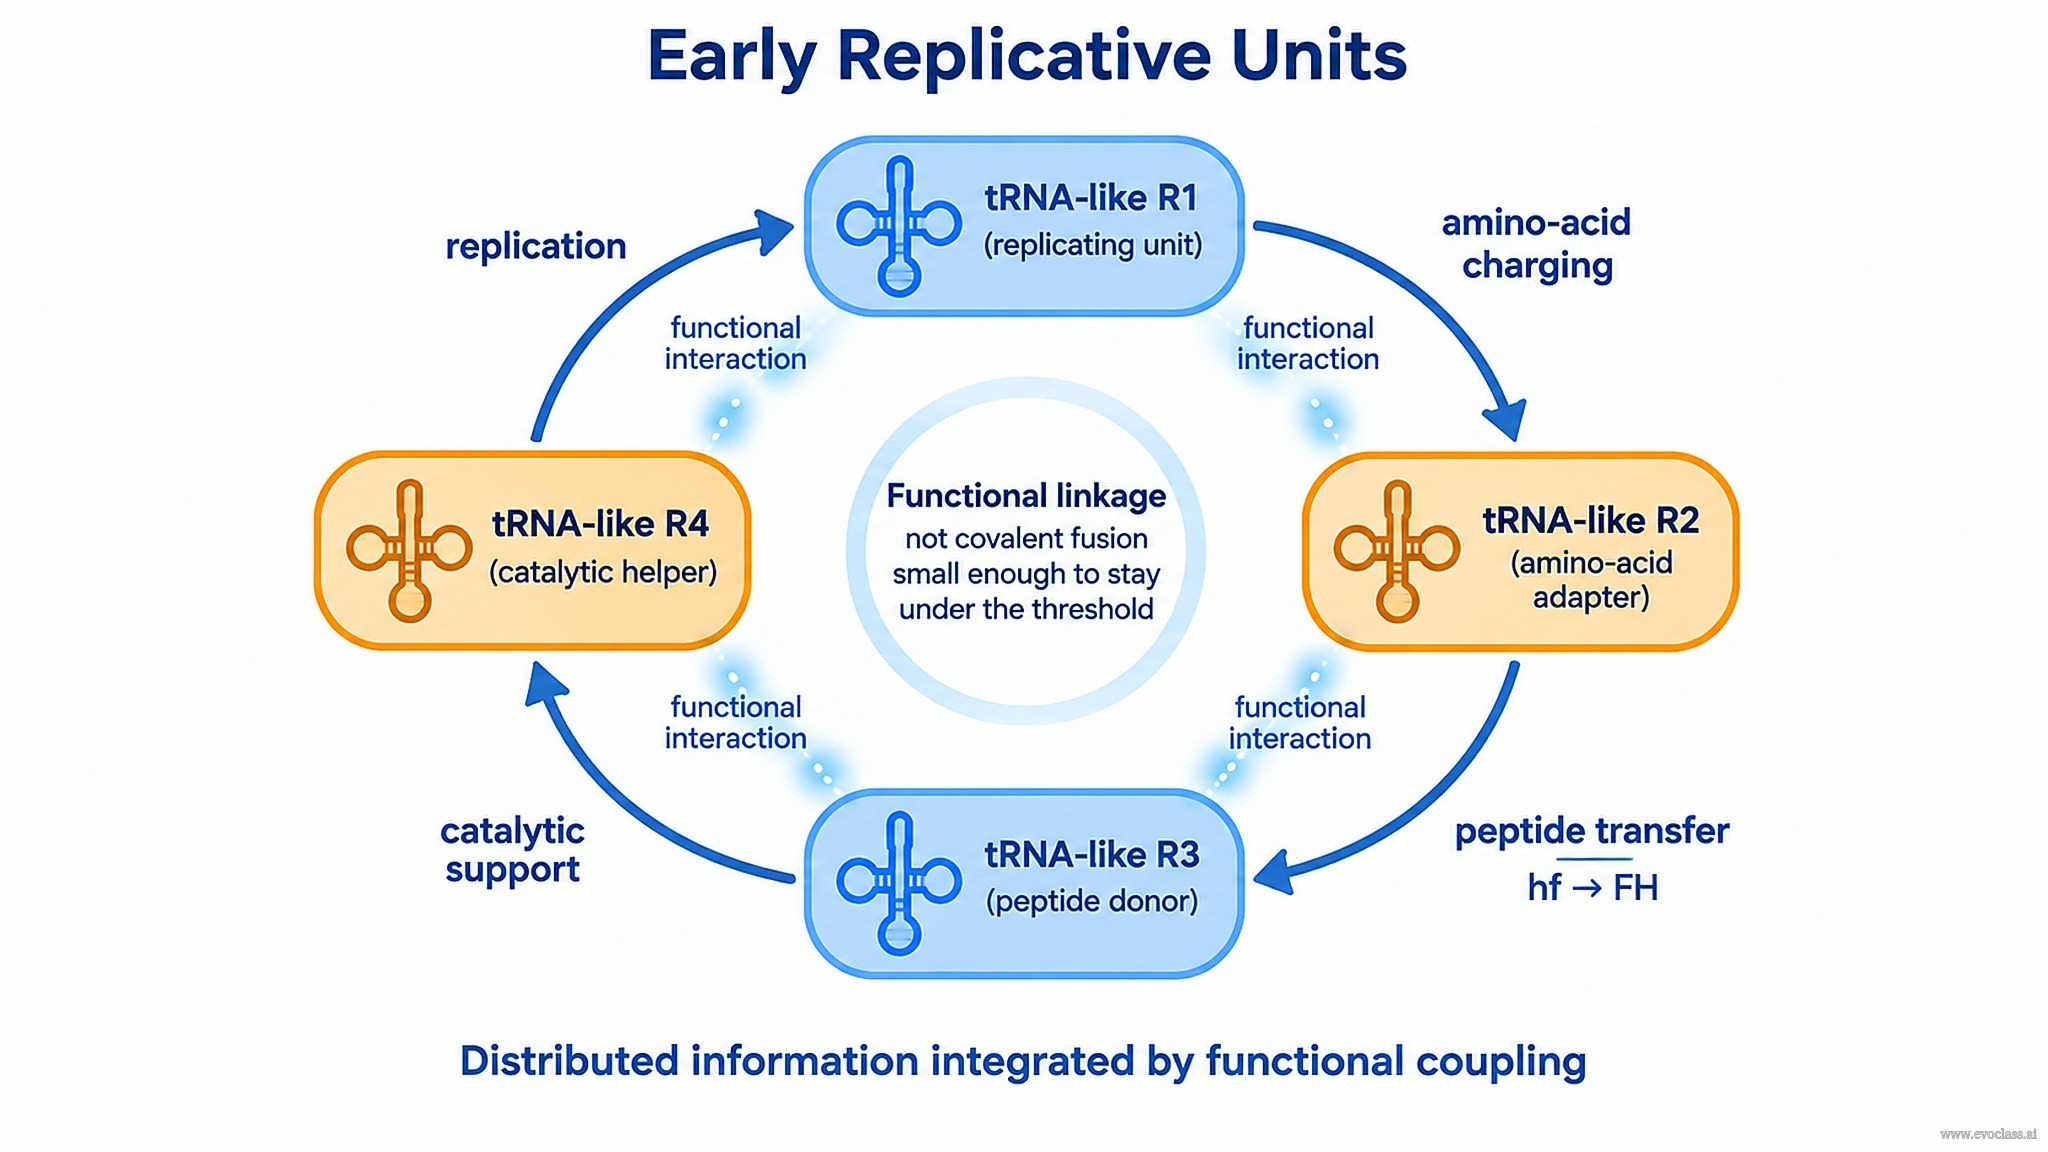
一个 早期复制单元 面临着一项严苛的物理限制。复制永远不可能完美,而 误差阈值 将复制子所能承载的信息量与其复制精度绑定在一起:序列越长,每一轮复制中暴露于错误复制的位点就越多,所编码的信息也衰减得越快。因此,早期复制子必须保持 足够小 以便以可用的保真度被复制,同时又要 足够有结构 以承载有意义的功能。能够同时满足这两项要求的分子,其尺寸出人意料地小——大致相当于 tRNA 的水平,约为 70–90 个核苷酸。
尺寸与保真度之间的权衡
将维持有意义序列的条件写为 q̄m ·
为什么类 tRNA 分子恰好落在这一窗口内
类 tRNA RNA 虽小,却并非无结构。它能可重复地折叠成紧凑的三叶草结构,并进一步压缩为稳定的 L 形结构,还能在其 3′ 末端装载一个氨基酸。折叠的可重复性是决定性的性质:相同的序列总是产生相同的形状,因此同一个分子可以同时充当模板和功能对象。小尺寸使它处于误差阈值之下;稳定的折叠使它能够进行化学活动——识别、结合、氨基酸处理和催化辅助。
无需连接的整合
将全部信息拆分到若干个小复制子上虽然解决了尺寸问题,却带来了新的问题:一组独立的复制子就是一组竞争者,最短或最快的那个会胜出。本幻灯片的核心论点是,整合并不需要将这些分子连接成一个大型基因组。整合可以是 功能性的:每个分子的产物——一段 RNA、一个氨基酸、一条肽、一个催化表面——都成为另一个分子的资源。当这些依赖关系闭合成一个循环时,这一整体就表现为一个协作单元,而这种环状的相互支持正是超循环组织最简单的实现形式。保持分散信息完整的是功能偶联,而非共价融合。
类 tRNA 分子作为原始肽化学的衔接子
同样的分子为通往肽合成架起了桥梁。类 tRNA RNA 可以充当衔接子或信使:它携带特定的氨基酸,并能在没有任何精密装置的情况下将该氨基酸交给正在延伸的肽链。由于只需处理数量有限的、足够常见的氨基酸,并且特异性可以存在于 RNA 自身的序列之中,仅凭那些因其他原因已经存在的复制子,一种原始的类翻译化学就成为可能。
hf → FH 构象切换
某个 tRNA 究竟处于 hf 还是 FH 构象,取决于它所连接的对象:一个氨基酸,还是一条肽链。将氨基酸转移到肽链上,会使该分子从 hf 翻转为 FH。该模型很好地解释了,在没有精密翻译装置的情况下,信息是如何被读取的——tRNA 自身的状态记录了转移步骤是否已经发生,从而赋予该过程一个单纯化学平衡所无法提供的方向性。
要点: 小分子、稳定的折叠以及环状的功能偶联——而非大型基因组——才是早期信息得以在误差阈值之下存续的原因。
早期复制单元四个类 tRNA RNA 复制子被排布在一个循环上,仅通过功能性相互作用相连——氨基酸装载、肽转移(在此过程中载体从 hf 翻转为 FH 构象)、催化支持和复制。由于这些依赖关系自我闭合,这一集合体表现为一个整合的单元,因此分散的信息无需被连接成单个大型基因组就能存续。