超循环组织能够将多个催化单元整合为一个自我复制的网络,但这种整合是有边界的。在 质量作用、恒定组织动力学下,超循环同时面临两种不同的压力: 自我复制的寄生体 它们获取催化作用却不予回馈,以及 组合突变负荷 随着基因组延长而迅速膨胀。二者共同界定了超循环组织的一个核心极限。
浓度单纯形上的寄生体
考虑一个双组分系统,其中寄生体
ẋ 的符号在阈值
角点状态与内部状态
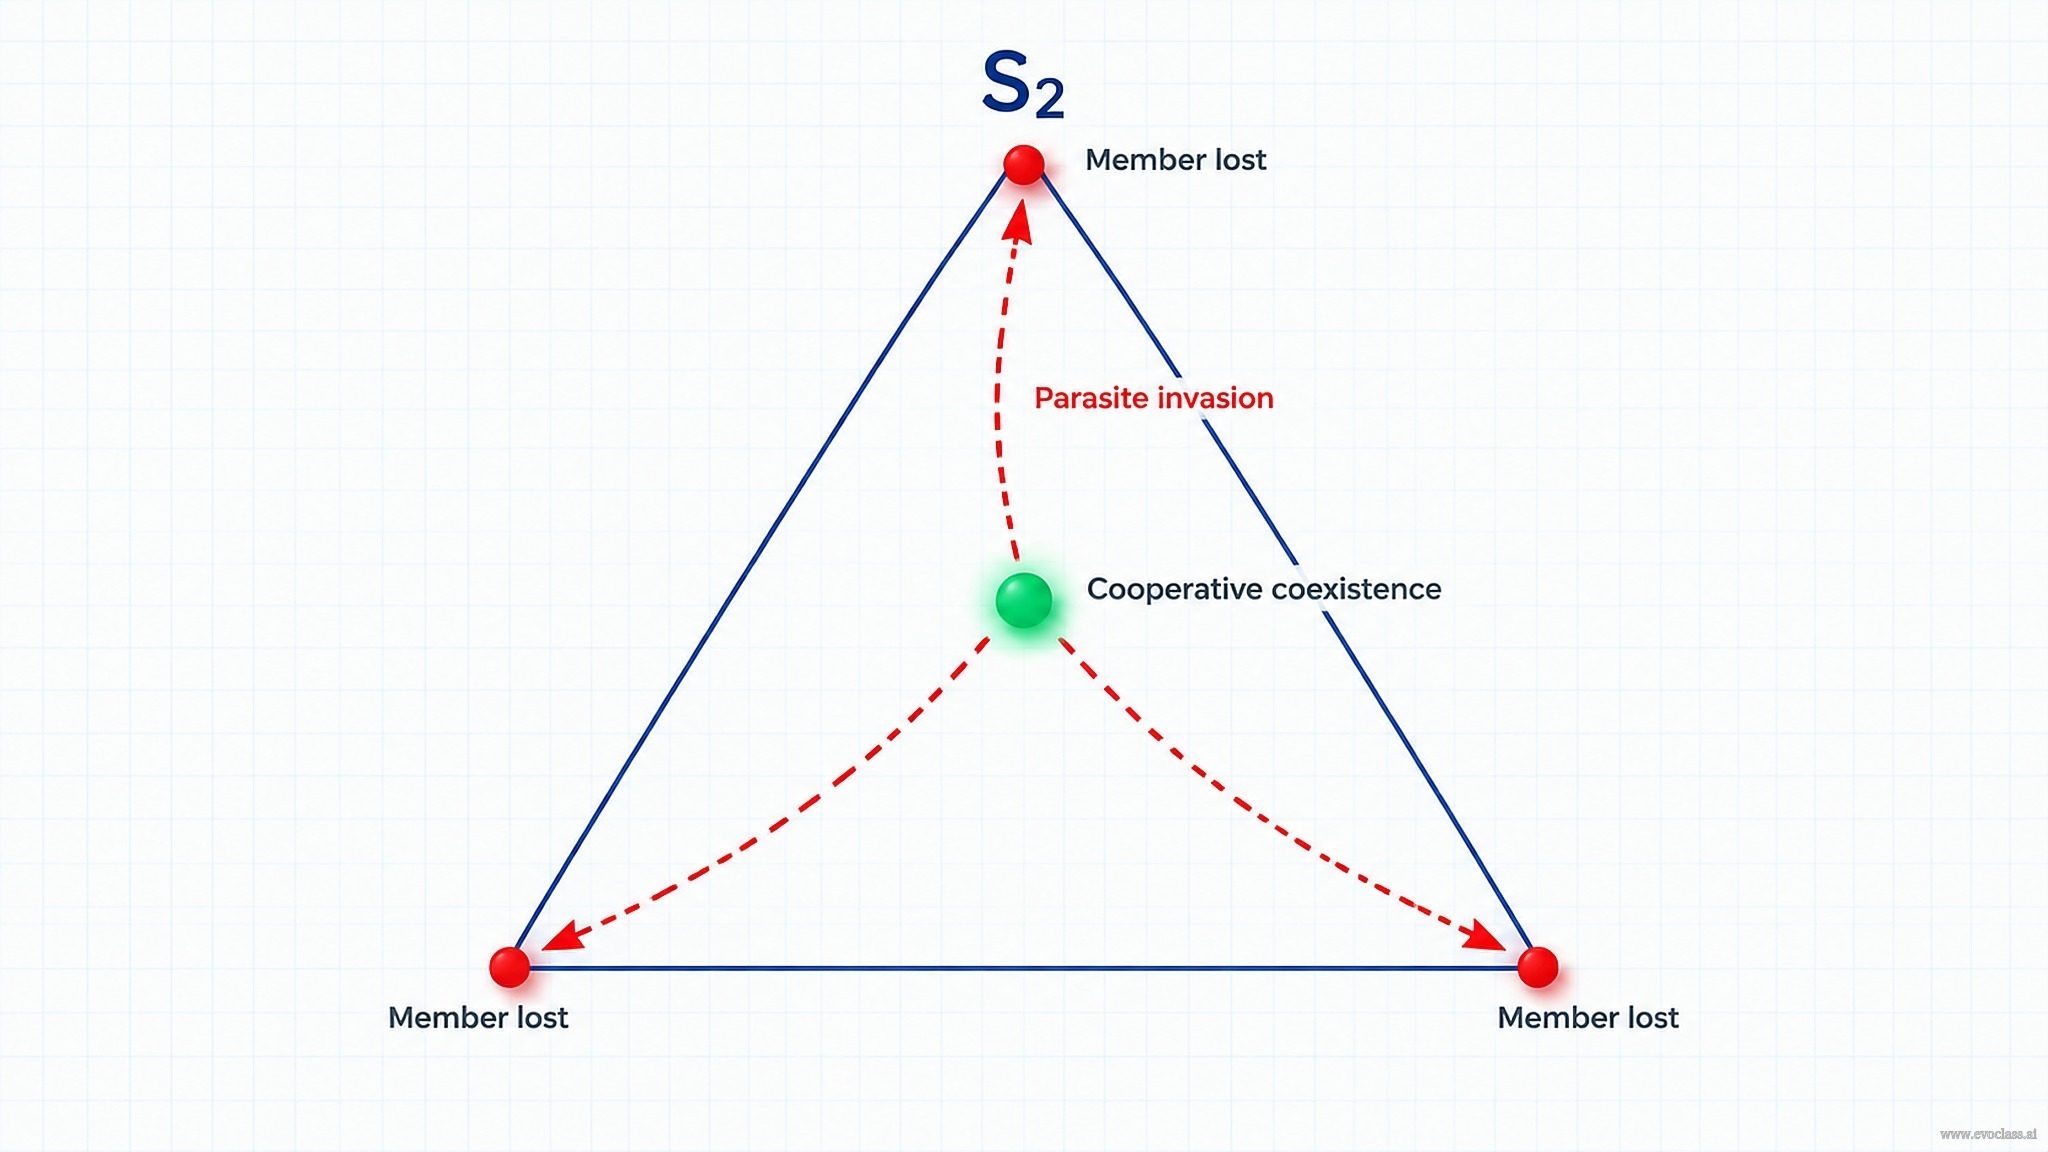
超循环在 浓度单纯形的角点上存在不动点,每个角点对应一个组分的缺失;此外还存在一个 内部状态 代表所有成员的合作共存。内部状态具有生产力但很脆弱:寄生体入侵可以将轨迹从该区域推向边界,在那里某一成员将永久缺失。
基因组增长在组合上代价高昂
延长基因组会急剧增加突变负担。对于长度为 100 的序列,存在
为何结构至关重要
这些极限是在充分混合、恒定组织选择的假设下推导得出的。若缺乏额外的空间或区室结构,较大的超循环将面临持续增加的寄生与突变压力,内部合作状态无法无限期维持。
寄生体入侵下的单纯形一个三角形浓度单纯形 S 2,其红色角点不动点标示着各超循环成员的缺失,而绿色内部点则标示合作共存。红色虚线箭头表示自我复制的寄生体将系统从脆弱的内部推向边界。
寄生体入侵下的单纯形
一个三角形浓度单纯形 S 2,其红色角点不动点标示着各超循环成员的缺失,而绿色内部点则标示合作共存。红色虚线箭头表示自我复制的寄生体将系统从脆弱的内部推向边界。