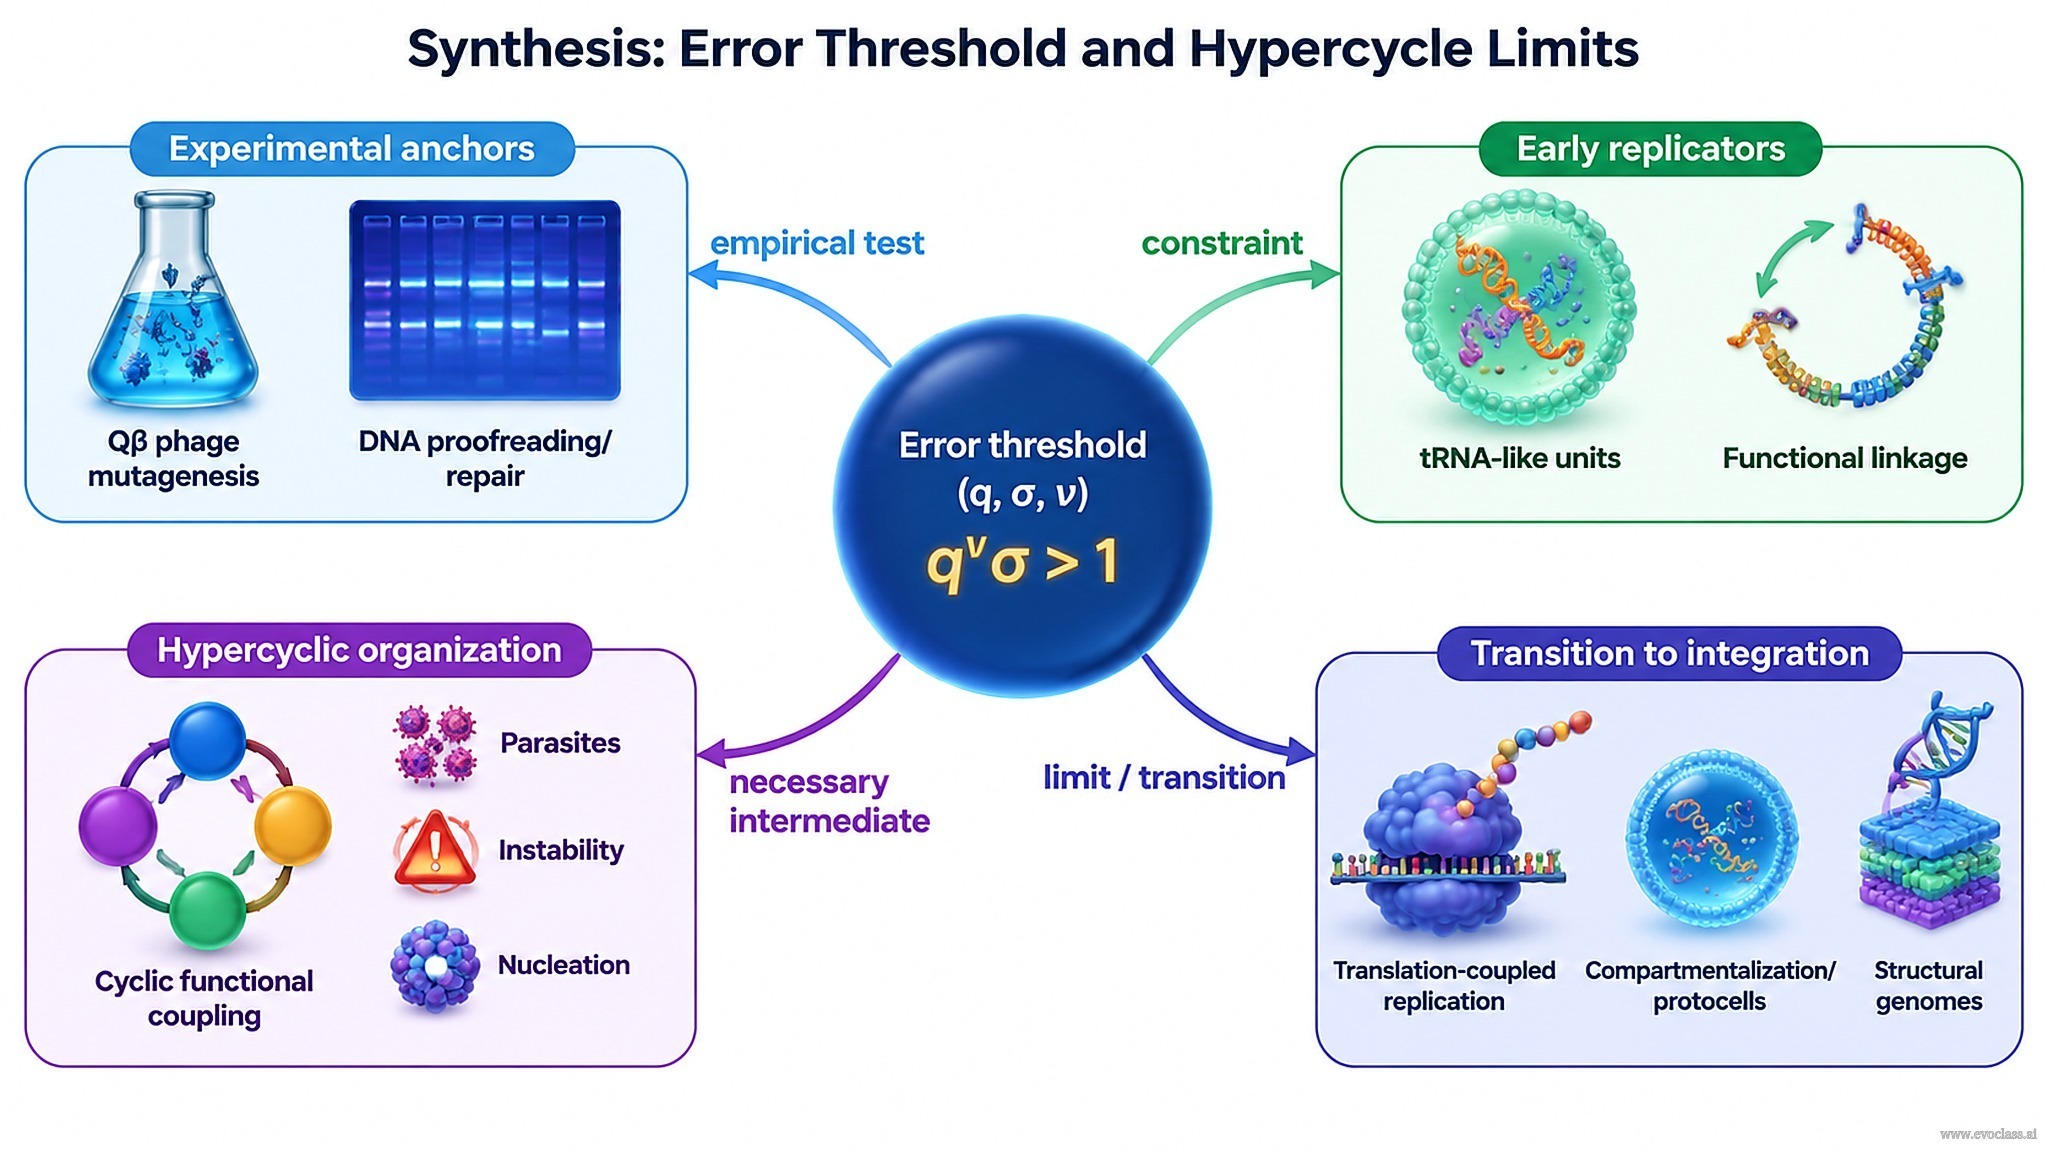
误差阈值 决定了原始复制子在给定复制保真度和选择优势下所能维持的最大稳定信息量。对于序列长度 ν 与选择优势 σ,稳定维持要求
句子演化博弈
句子演化博弈用三个变量形式化了同一约束: q̄m (复制准确率)、 σm (选择优势)以及 vm (序列长度)。三者共同预测一段有意义的序列能否被维持还是丢失。如果在不提高 q̄m 或 σm 的情况下增大 vm,就会把系统推过误差阈值,因此只有当保真度、选择压力和序列长度共同达到平衡时,稳定信息才能存续。
实验依据:Qβ 噬菌体与 DNA 校对
Qβ 噬菌体诱变实验提供了一个实证依据:随着突变负荷增大,突变体分布变宽,野生型的优势被侵蚀,展示出向误差阈值逼近的过程。相反,DNA 校对与修复降低了有效突变率 μ,从而移动了边界,使更长的稳定基因组成为可能。因此,RNA 复制子倾向于逼近误差阈值,而具备校对机制的生物则能维持更多信息。
早期复制子与功能耦合
早期复制单元很可能保持短小且类似 tRNA 的形态。其保真度同时限制了编码能力和催化能力,因此无法承载大型基因组。它们并非通过共价连接,而是通过功能或催化耦合相互连接:每个复制子支持其他复制子的复制或活性,形成的是一个协作网络,而非单一整合的染色体。
超循环组织:一个必要的中间阶段
超循环组织以循环方式耦合复制子,从而实现集体选择、整合更多功能,并开辟通往翻译的路径。因此在低保真度条件下,它是一个必要的中间阶段。然而超循环也有其局限:它们易受寄生性或自私突变体的利用,依赖空间或区室结构,存在稳定性与成核问题,可能表现出振荡或极限环动力学,并且无法在结构上整合全部基因。
超越超循环:翻译、区室与结构性基因组
超越超循环的改进包括翻译偶联复制、区室化或原细胞化,以及向统一基因组的结构性整合。这些变化使遗传与整个整合单元保持一致,使选择能够作用于整套基因,而非作用于松散耦合的复制子。
误差阈值概念图该概念图以误差阈值条件为中心,分支出若干方向:实验依据(如 Qβ 噬菌体诱变与 DNA 校对)、具有功能连接的早期类 tRNA 复制子、伴随寄生物与不稳定性极限的超循环组织,以及向翻译、区室化和结构性基因组的过渡。箭头标签分别标注「实证检验」「约束条件」「必要中间阶段」和「极限/过渡」。