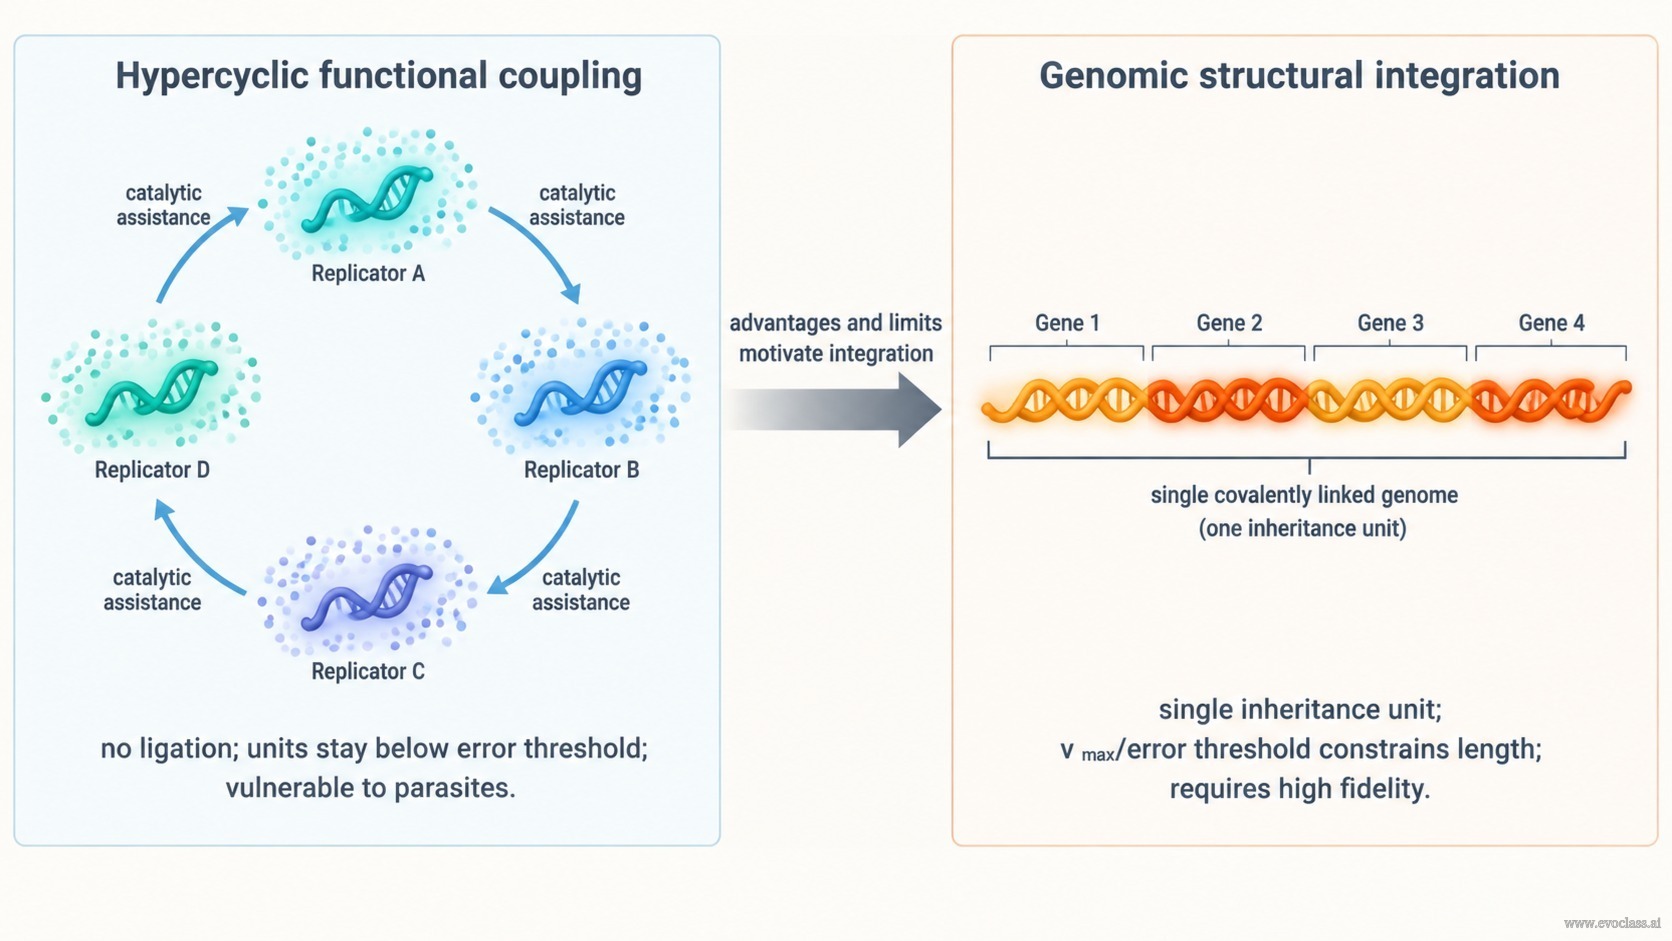
超循环整合是独立复制的分子之间通过功能性、非共价方式进行的协作。它将相互竞争的单元耦合成一个更高层次的复制系统,而不必将它们连接成一个大基因组。这一区别之所以重要,是因为单一长基因组会面临误差阈值:在低复制保真度下,突变负荷会以组合方式增长。对于一个 100 位点的序列,存在 100 个单误差突变体、4,950 个双误差突变体和 161,700 个三误差突变体;这些数字说明了为什么不断增长的单一基因组代价高昂,以及为什么耦合的小单元在早期可能更受青睐。
在超循环中,每个单元以催化方式协助下一个单元,形成一个闭环。由于每个单元都保持较短,它能够保持在误差阈值之下,并可以相对于自身的突变体继续演化。突变仍然分散在不同的单元之间,而催化上的相互依赖则提供了集体功能。因此,这些单元相对于各自的突变云仍然具有竞争力,从而保留了特定信息,而不是将其淹没在一个单一的长基因组中。
然而,超循环组织也存在局限。第一,它容易受到寄生物的影响:那些接受催化支持却不作出贡献的自私复制子。协作性整合并不会自动稳定。第二,功能性耦合并不等于完整的结构性整合;分离的单元必须被协同复制和遗传,从而产生化学计量、分离和联合功能等问题。这些局限促使了后来向整合基因组和细胞组织的转变。
优势与局限
- 非共价整合: 在不连接的情况下耦合相互竞争的分子;避免或推迟了以下阈值关系:
该阈值关系使得不断增长的单一基因组在低保真度下变得不可行。 - 保留演化能力: 每个单元相对于其突变体仍具有竞争力,并能进一步演化;突变仍然分散在不同的单元之间。
- 集体功能: 催化上的相互依赖协调了许多小的准物种/突变云。
- 寄生物易感性: 自私复制子可以接受支持而不作出贡献,因此协作并不会自动稳定。
- 结构统一性不完整: 分离的单元需要协同复制和遗传,从而产生化学计量、分离和联合功能等问题。
因此,超循环整合作为一种演化中间态具有优势,但作为长期解决方案则存在局限。后来的整合必须在保持竞争力的同时克服保真度和
超循环整合双面板对比。左侧:由短催化复制单元组成的循环,以功能性方式耦合,每个单元都有自己的突变云;标注指出无连接、单元保持在误差阈值之下,以及易受寄生物影响。右侧:一个共价连接的基因组作为单一遗传单元,受误差阈值约束并需要高保真度。中央箭头表明,超循环组织的优势与局限促成了结构性整合。
超循环整合
双面板对比。左侧:由短催化复制单元组成的循环,以功能性方式耦合,每个单元都有自己的突变云;标注指出无连接、单元保持在误差阈值之下,以及易受寄生物影响。右侧:一个共价连接的基因组作为单一遗传单元,受误差阈值约束并需要高保真度。中央箭头表明,超循环组织的优势与局限促成了结构性整合。