在 翻译耦合超循环中,每条 RNA 模板不仅被复制,还会被翻译为多肽,该多肽通过可逆复合物形成重新结合到 RNA 上。这一结合步骤由解离常数
为什么低总浓度会简化动力学
当 RNA 和多肽的总浓度远小于
- 游离物种占主导。 [复合物] 远小于 [RNA] 和 [多肽],因此动力学主要由游离物种而非结合物质承载。
- 双线性复合物浓度。 [复合物] ≈ [RNA][多肽]/Kd,即与两个游离浓度的 乘积 成正比,而不是与其中任一浓度单独成正比。
- 二阶催化通量。 由于复合物是催化剂,介导通量 kcat[RNA][多肽]/Kd ≈ (kcat/Kd)[RNA][多肽] 是一个二阶质量作用项——正是基本超循环所使用的耦合形式。
有效速率常数与保持的拓扑结构
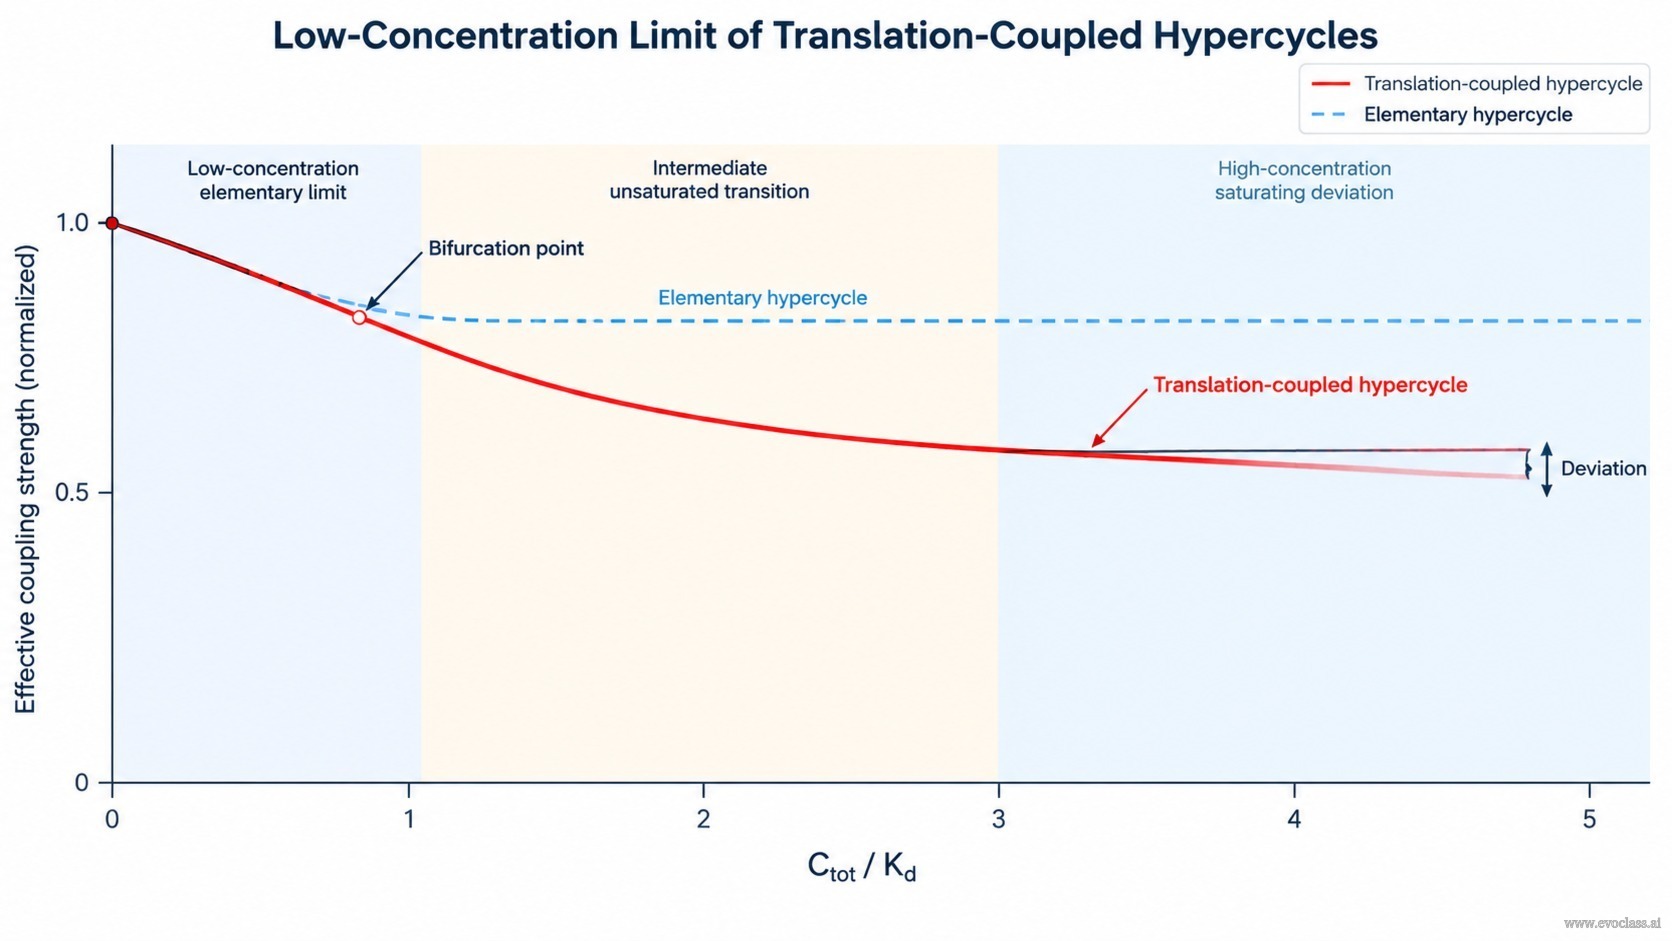
结合常数与催化常数仅通过它们的组合进入方程,因此可以被吸收为单一的有效速率常数 keff = kcat/Kd。结果是一个具有重整化系数的基本超循环。关键在于,环状耦合拓扑结构得以保持:每个成员仍催化环中下一个成员的复制,而翻译在此极限下并未引入独立的动力学耦合——它只是重新标度了速率。这正是为什么只要满足稀释条件,为基本超循环建立的不动点、稳定性、极限环和误差阈值分析就能直接适用于翻译耦合超循环,也正因如此,这一简化对于选择与误差阈值推理才如此有用。
简化何时失效
这一简化是渐近性的,并非恒等关系。它仅在复合物形成未饱和时成立。当总浓度升高到接近
有效性条件
仅在 [RNA] 和 [多肽] 远低于
翻译耦合超循环的低浓度极限翻译耦合超循环的有效耦合强度随无量纲总浓度 C_tot/K_d 的变化曲线。在低浓度下,实线的翻译耦合曲线与虚线的基本超循环参考线重合,因为稀疏且未饱和的 RNA-多肽复合物产生双线性催化通量,其有效常数为 k_cat/K_d;随着浓度增大,复合物饱和,两条曲线分离。
翻译耦合超循环的低浓度极限
翻译耦合超循环的有效耦合强度随无量纲总浓度 C_tot/K_d 的变化曲线。在低浓度下,实线的翻译耦合曲线与虚线的基本超循环参考线重合,因为稀疏且未饱和的 RNA-多肽复合物产生双线性催化通量,其有效常数为 k_cat/K_d;随着浓度增大,复合物饱和,两条曲线分离。