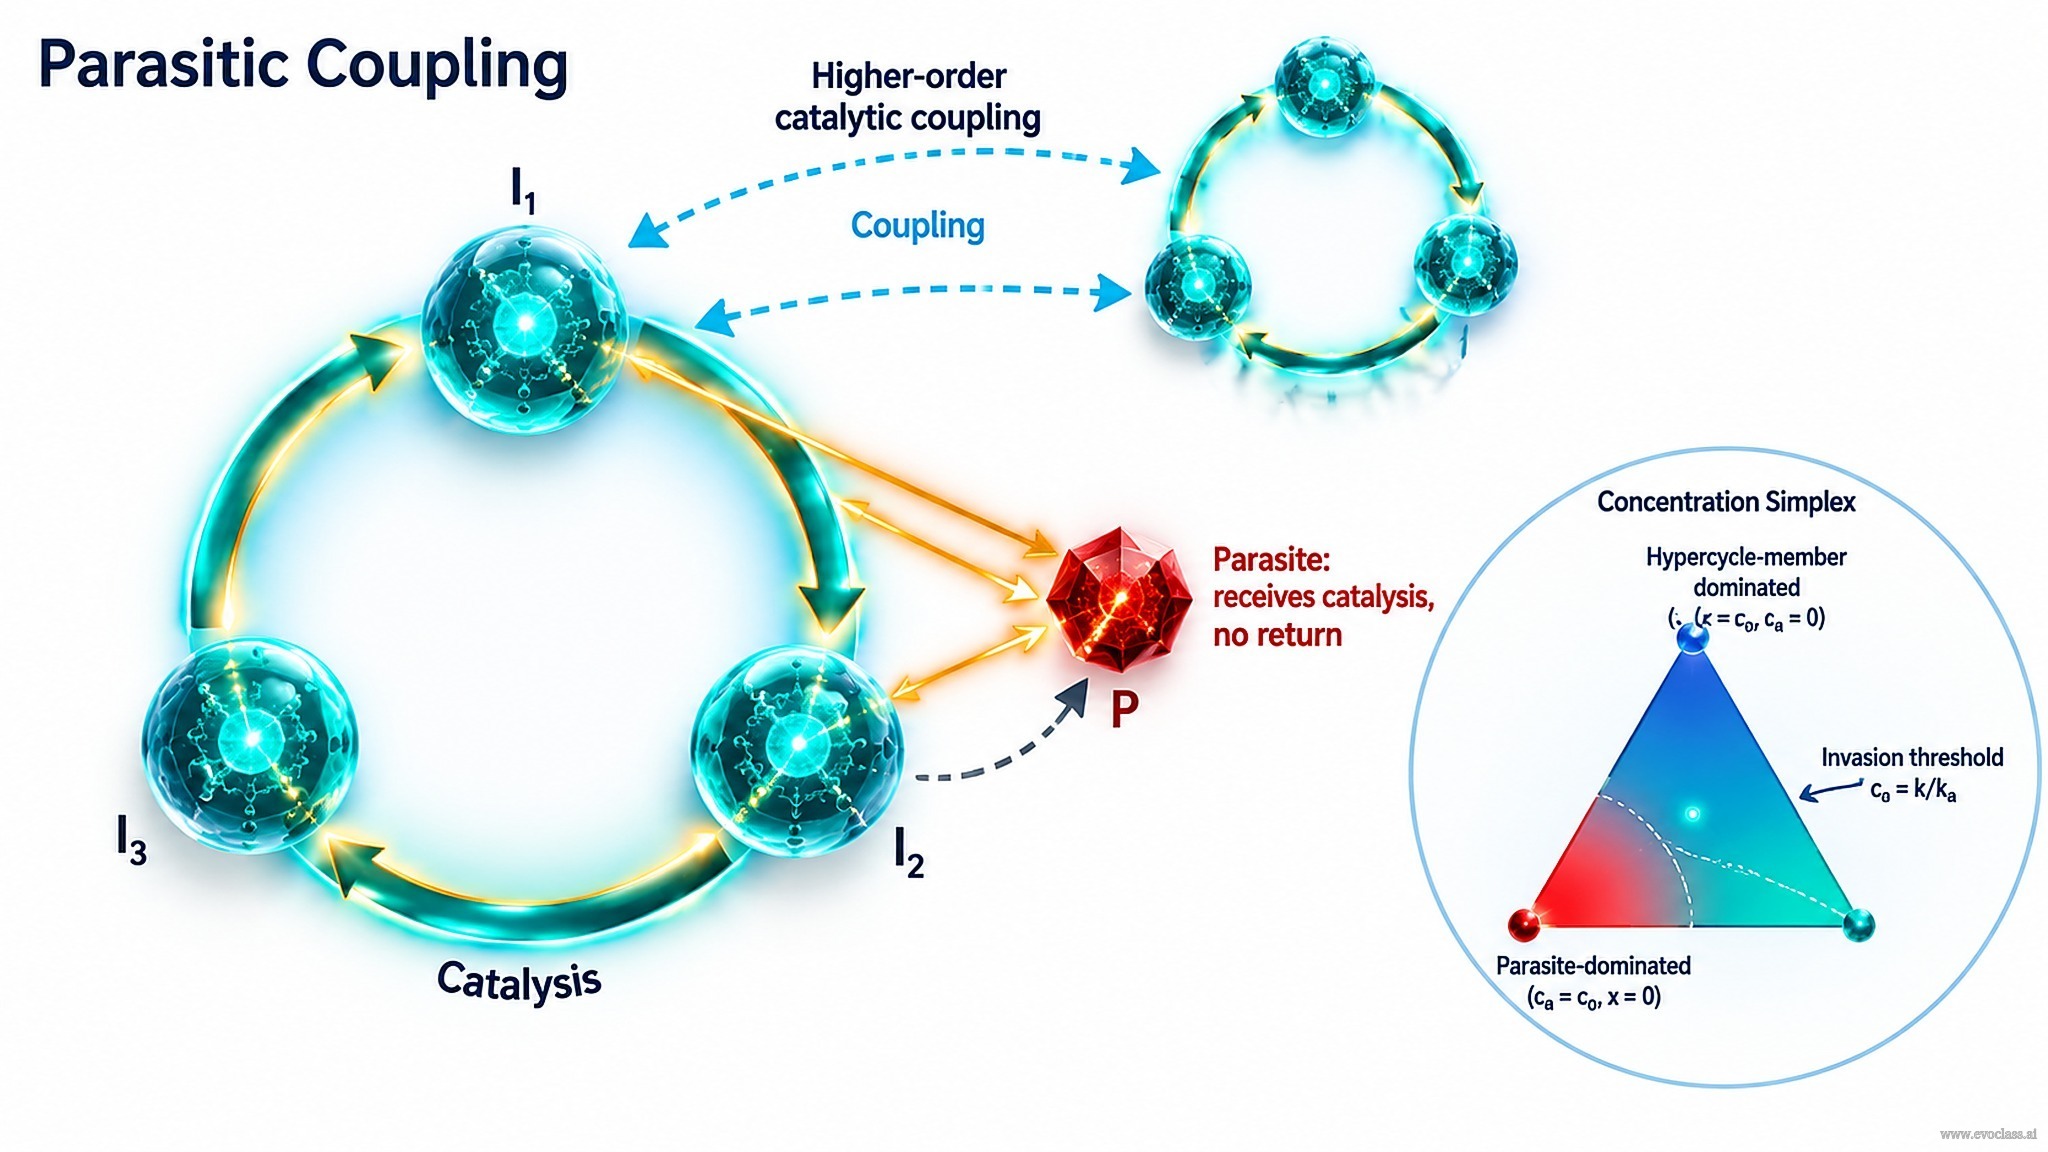
超循环组织 通过催化闭合将原本相互竞争的复制单元整合起来,但它仍然容易受到寄生的剥削,并受到错误阈值和信息量的限制。高阶催化耦合——即超循环催化其他超循环——以层级方式扩展了这种组织,但也带来了新的整合与寄生问题。
寄生耦合
A 寄生物 从一个或多个超循环成员处获得催化支持,却不参与超循环的催化回路。它利用该循环,却不回馈催化帮助。对于在总浓度恒定的条件下与超循环成员 x 竞争的自我复制寄生物 A
ċₐ = kₐ cₐ² − (cₐ/c0)(kₐ cₐ² + k cₐ x)
该系统在浓度单纯形 S 的角点处有两个不动点2:寄生物主导(cₐ = c0,
整合问题
由于 vₘₐₓ 的阈值关系,直接连接成一个大型复制单元是不可行的。整合后的单元必须对其自身突变体保持竞争力,才能进一步进化并避免丢失其特定信息。指定的整合问题问道:“除了连接成一个大型复制单元(由于 vₘₐₓ 的阈值关系而不可行)之外,人们如何设想竞争性分子的整合?(注意,待整合的单元必须对其突变体保持竞争力,以便进一步进化且不丢失其特定信息。)”
可能的途径包括:
- 功能耦合:分子在无共价融合的情况下进行催化合作。
- 区室化:各组分共同保持在有界体积内。
- 超循环组织:竞争者通过催化循环被整合在一起。
任何途径都必须使整合单元对其自身突变体保持竞争力。
为何要对分离的基因进行超循环组织?
单个大型基因组随着长度增加会累积组合爆炸式的突变序列。对于 100 个位点,存在 100 个单错误突变体、4950 个双错误突变体、161 700 个三错误突变体,依此类推。超过错误阈值后,无差错复制变得不可能。超循环组织分散了信息,并允许在突变模块之间进行选择,从而减轻了维护单个长基因组的负担。
限制与改进
超循环组织的局限包括易受寄生物侵袭、总信息量受错误阈值约束,以及分离基因之间协调缓慢或效率低下。提出的改进或转变包括更紧密的结构整合、区室化,以及演化出确保合作基因共同分离的单一基因组。
高阶催化耦合
当超循环催化其他超循环时,就发生了高阶催化耦合。这将整合扩展到单个循环之外,但引入了新的寄生、协调和稳定性挑战。在翻译耦合的超循环中,将复制与多肽合成耦合会引入复合物形成和结合常数;低浓度和高浓度极限以及饱和动力学都会改变相同的整合与寄生约束。
寄生耦合超循环环支持一个不给予催化回报的寄生节点,虚线箭头则显示一个超循环催化第二个超循环。内嵌的浓度单纯形标出了寄生物主导和超循环成员主导的角点不动点,以及入侵阈值 c