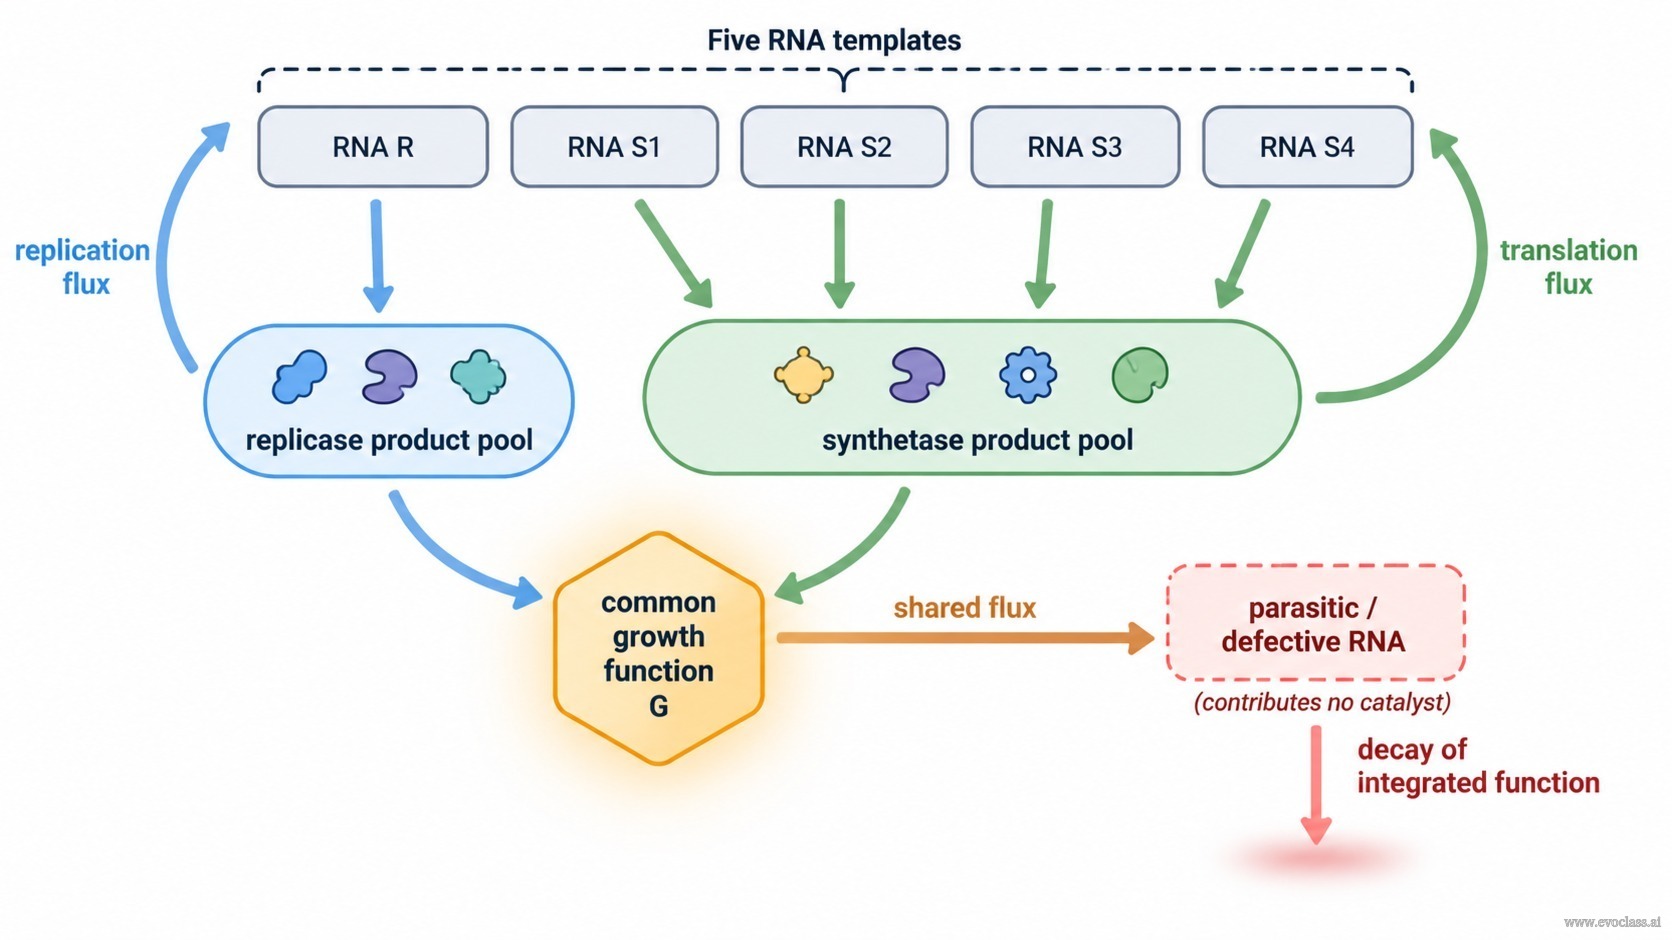
最小复制酶–合成酶方案 是最小的翻译偶联超循环,能够以具体的分子方案形式表述:一组 RNA 链,其中一条模板(R)编码一种复制酶,四条模板(S1–S4)编码合成酶。该方案刻意不采用单一自我复制的 RNA。相反,它是一个共同体:同一 RNA 群体既为复制提供模板,也为翻译提供信使。
功能联系:复制酶产物拷贝全部五条 RNA 链,而合成酶产物则使这同样五条链得以翻译。由于同一群体既是模板又是催化产物,复制与翻译相互偶联,而非彼此独立的子系统。这种偶联正是最小超循环的结构核心。
共享生长约化:当催化剂作用于整个集合时,各项复制与翻译项并非专属于编码该催化剂的链,而是成为公共池项。在数学上,该偶联系统约化为一个单一的 共同生长函数G 适用于所有链。每条链的净生长可表示为集体贡献加上一个相对组成项,但产生催化剂所获得的选择性回报被稀释了,因为每个成员都取用相同的生长通量。
衰退机制:由于所有成员都取用相同的生长通量,减少了催化产物或完全省略催化产物的突变体仍能获得共享收益。如果这类变体复制更快——例如因为其 RNA 更短——它就能在不贡献复制酶或合成酶活性的情况下提高相对频率。这会稀释功能性催化剂,并使寄生性或退化链不断累积。因此,仅靠最小方案不足以实现稳健的达尔文式整合。
稳定性含义:要抑制衰退,就需要额外的组织化。区室化、空间结构或超循环封闭,可以通过将催化剂、模板与产物共定位,使一条链的存活取决于其自身的催化贡献。这样的组织化可维持化学计量平衡,并防止共同生长通量被非生产性变体所攫取。
分析细节:在原始论述中(第 66–76 页),共享生长约化是通过种群变量的仿射变换展现出来的。该变换将集体生长模式与相对组成模式分离开来。共同生长模式描述整个集合的扩张,而其余模式则描述组成如何变化——包括寄生性或缺陷型链的入侵。这一坐标变换阐明了为何共享生长无法选择性地回报各组分的催化贡献。
最小复制酶–合成酶方案五条 RNA 模板——R 编码复制酶,S₁–S₄ 编码合成酶——汇入复制酶与合成酶产物池。两个产物池共同汇聚于一个共同的生长函数 G。一条以虚线表示的寄生性 RNA 接收相同的通量,却不贡献任何催化剂,导致整合功能的衰退。