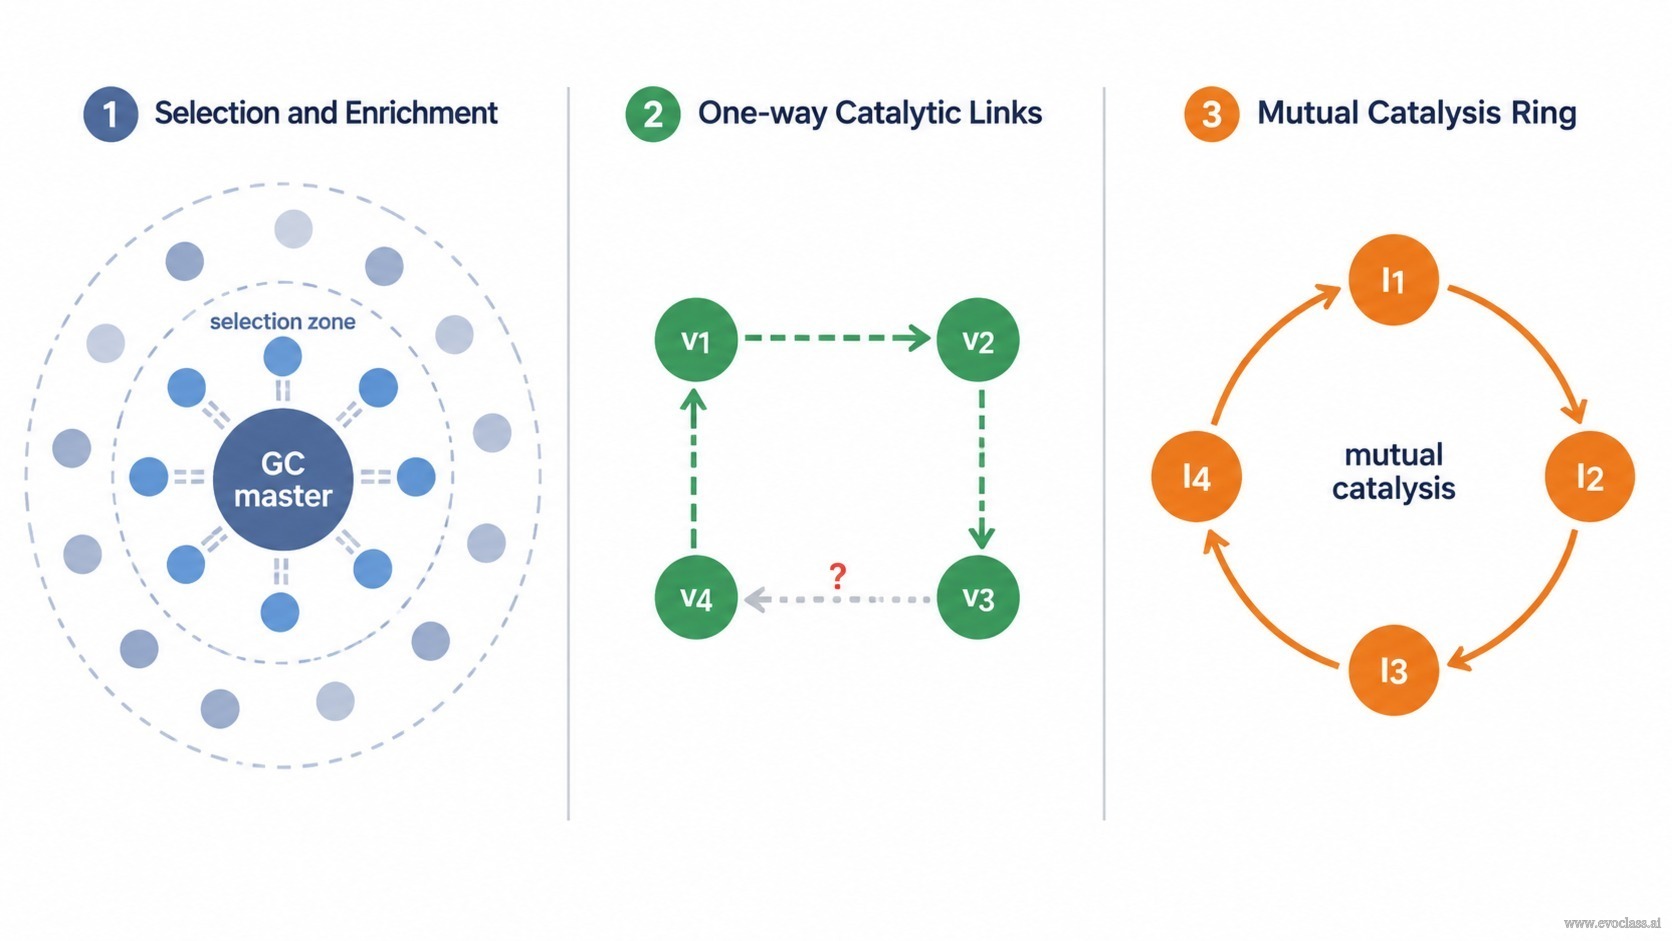
一个 超循环 是由相互催化彼此复制的复制子构成的闭合集合。由于该循环由 相互 催化若干不同序列之间的反应来定义,它无法从单个模板拷贝成核:一个分子并不包含完整的循环功能,而它的第一个拷贝也没有可用来闭合循环的催化伙伴。因此,超循环组织不可能骤然出现;它必须在种群层面上逐步组装,而这一组装最可能的摇篮就是富含GC的准物种。
为何单个模板无法启动循环
自催化复制子是自给自足的:一条能为自身复制充当模板的单链可以从一个分子开始指数增长,因为该分子与其产物承担相同的功能。超循环则不属于此类。它的定义性特征是一个 催化支持的闭合回路 其中成员 i 增强成员 j 的复制,j 又增强 k,依此类推直到循环回到 i。去掉任何一个成员,其余成员都无法再将其再生。因此,任一成员的第一个拷贝都是死路:它没有互补的伙伴,也不存在能优先扩增它的闭合催化循环。
富含GC的准物种提供原材料
准物种并非单一序列,而是围绕一个占主导地位、类似主序列的序列分布、通过突变相互关联的序列云。在富含GC的池中,这片云异常充实。每多一个G–C配对就多出一个氢键,因此富含GC的茎区在更高温度下才解链、折叠更可靠,并且在二级结构崩溃之前能耐受更多点突变。因此,这个储库同时具备成核问题所需的两个条件:变体在环、茎和表面几何结构上具有高度局部多样性,以及足够的结构稳定性,使各个变体保持功能的时间长到足以接受选择的检验。
突变探索耦合,选择将其保留
真正搜索相互作用空间的正是突变探索。一个点置换可以重塑发夹、暴露新的结合表面,或招募依赖金属离子的催化中心,从而改变弱耦合系数
从准物种组织到超循环组织
随着连接不断累积,突变体分布的形状也随之改变。多样性不再围绕单一主序列散布,而是向一小部分相互催化的模板凝聚;只有当连接足够多、使网络得以闭合而不再是开放或分支状态时,环闭合才会发生。闭合之前,整体表现为带有若干相关变体的准物种。闭合之后,生长是协同且超加性的:循环作为一个整体增殖,而且由于每个成员都为下一个提供支持,这个耦合集合能够超越与之竞争相同单体和复制酶的孤立准物种。这正是超循环可以在没有任何预先形成的多基因基因组的情况下出现的方式——通过招募和整合已存在于富含GC储库中的突变基因。对双成员情形所做的底层不动点分析以速率系数的形式表达了同样的观点:这一对最终走向竞争排斥、其中一个成员被选择,还是稳定的超循环共存,只取决于自我增强与相互增强的相对大小,而该判据可推广到三成员和 n 成员的循环。
当路径失败时
- 复制保真度 必须保持在错误阈值之上。如果突变率过高,储库就会消散为一片弥散的云,其中没有任何变体能存续足够长的时间以建立连接。
- 功能兼容性 也很重要:各成员之间不得对彼此的折叠或催化产生破坏性干扰,否则不断累积的连接会相互抵消而非彼此强化。
- 寄生物负荷 必须保持较低水平。一个借助正在形成的循环而被高效复制、却不回馈任何催化的自私模板,会耗尽共享资源,并可能在网络闭合之前就使其失稳。
示例推演。 在富含GC的RNA池中,一个占主导的类GGC/GCC序列及其突变体构成一个准物种。某个突变体可能微弱地协助邻近序列的复制,而选择会保留这对伙伴,因为它们的联合产出超过任何一方单独所能达到的水平。进一步的突变产生相互协助,缺失的那条支路被补上,一个双成员或更大的循环就此闭合。一旦闭合,超循环式生长便会胜过孕育它的孤立准物种。
从富含GC的准物种中涌现三个阶段从左到右依次阅读。首先,一个富含GC的主序列位于突变云的中心,内部的选择区标示出被逐步富集的变体,而稳定的GC碱基对保护着它们的折叠结构。其次,存活的变体由弱的单向催化连接相连,其中一个连接仍以虚线表示,因为网络尚未闭合。第三,这些连接变为相互的,网络闭合成一个超循环环,其中每个成员催化下一个成员,因此整个集合能够超越孤立的准物种。