第 69 页汇集了 间接但趋同的证据 表明同一条 RNA 链可以同时充当 适配体 ——一种类似 tRNA 的载体,把氨基酸递送给正在延伸的链——以及充当 信使 ——一段类似 mRNA 的可读序列。如果两种角色可以共存于同一分子中,那么超循环 RNA 复制与原始翻译之间的壁垒便骤然降低:既不需要单独出现一类适配体,也不必在最初阶段先出现合成酶,才能解码信息。
四条趋同的证据线索
- tRNA 序列与结构比对:适配体与信使功能可以共存于同一 RNA 家族——一个分子既承担接受/转移氨基酸的角色,又携带可读的序列信息。
- Qβ 微小变异体的从头合成:RNA 无需预先存在的翻译装置即可自我复制,因此在复杂翻译出现之前,存在与 tRNA 尺寸相当、可重复复制的大 RNA 分子是合理的。
- 简单的 β-折叠酶前体:早期功能蛋白质并不需要复杂折叠;极简肽段无需完整折叠的酶即可提供原始功能。
- tRNA 构象柔性(hf ↔ FH):适配体与模板两种角色并未完全分离为彼此不同的 RNA 类别。
hf ↔ FH 转换
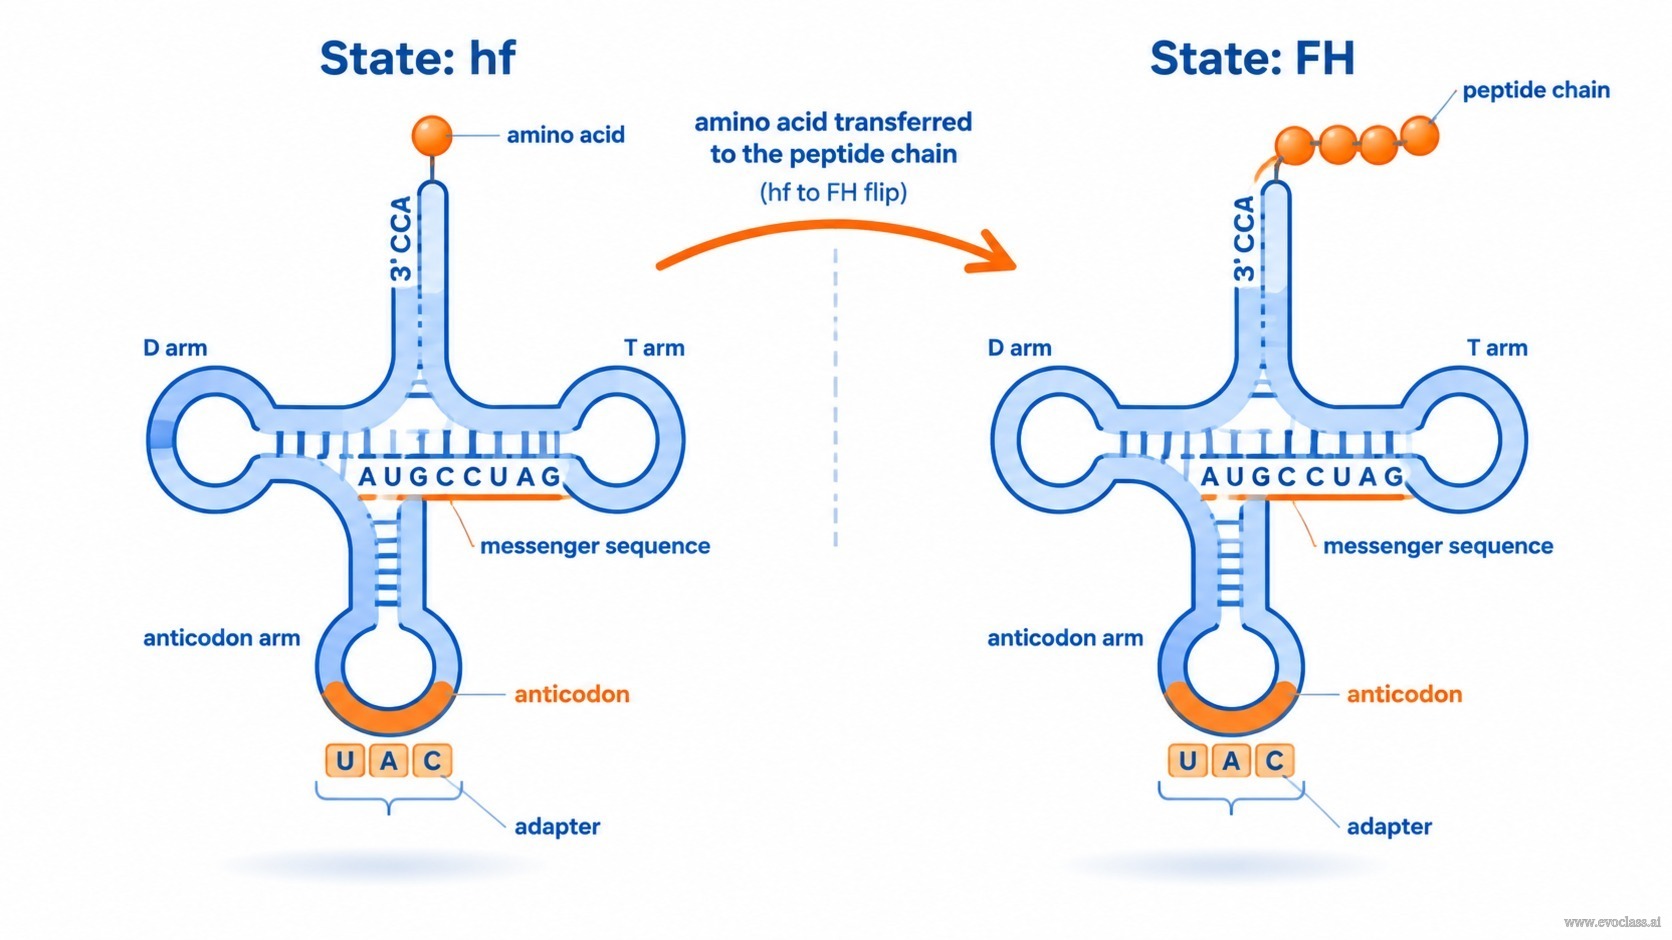
两种构型中实际存在哪一种,取决于 tRNA 是与氨基酸结合还是与肽链结合。通过把氨基酸转移给肽链,tRNA 会从 hf 翻转为 FH 构型(参见图 49)。该模型很好地解释了在缺乏复杂翻译装置的情况下信息如何被读出:递送氨基酸的同一条链同时也呈现出可读的序列。
值得认真对待的反问
既然已存在与 tRNA 尺寸相当的可重复复制 RNA 分子,并且具备以有限几种足够常见的氨基酸来合成原始形式蛋白质的前提条件,那么翻译的起源又该如何设想?这一问题可以进一步凝练为一个反驳: “这个问题也可以换一种问法:为什么不用小寡核苷酸适配体呢?” 双重功能模型的回答是:该分子必须足够长且具有足够结构,才能同时支持适配体识别与信使可读性,因此微小的寡核苷酸并不够用。
解读提示
这些只是关于双重功能 RNA 世界的合理性论证,而非直接的化石证据。Qβ 微小变异体是一种现代复制子类似物,β-折叠前体是基于最小折叠的推断,hf/FH 转换则是针对早期翻译的机制假说,而非直接的远古证据。
tRNA 的 hf 到 FH 转换同一条 tRNA 链呈现两种状态:hf 状态,此时它携带氨基酸;FH 状态,即该氨基酸被转移给肽链之后。由于同一条链还呈现出可读的序列,适配体角色(反密码子识别)与信使角色(可读模板)并未分离为彼此不同的 RNA 类别——这正是无需复杂翻译装置即可读出信息的原因。
tRNA 的 hf 到 FH 转换
同一条 tRNA 链呈现两种状态:hf 状态,此时它携带氨基酸;FH 状态,即该氨基酸被转移给肽链之后。由于同一条链还呈现出可读的序列,适配体角色(反密码子识别)与信使角色(可读模板)并未分离为彼此不同的 RNA 类别——这正是无需复杂翻译装置即可读出信息的原因。