竞争性分子复制因子的整合面临一个根本性约束:误差阈值。一个单一的长复制单元——例如通过将若干基因连接成一个基因组而产生——在每个复制周期中会积累过多突变。一旦突变率超过阈值,主序列就会丢失,该单元所编码的特定信息也随之退化。因此,整合不能仅通过制造一个更长的分子来实现;整合单元必须能够在其自身的突变体分布中保持可选择性。
为了在不违反以下阈值关系的前提下整合竞争性分子,人们提出了三条替代路径,该阈值关系针对
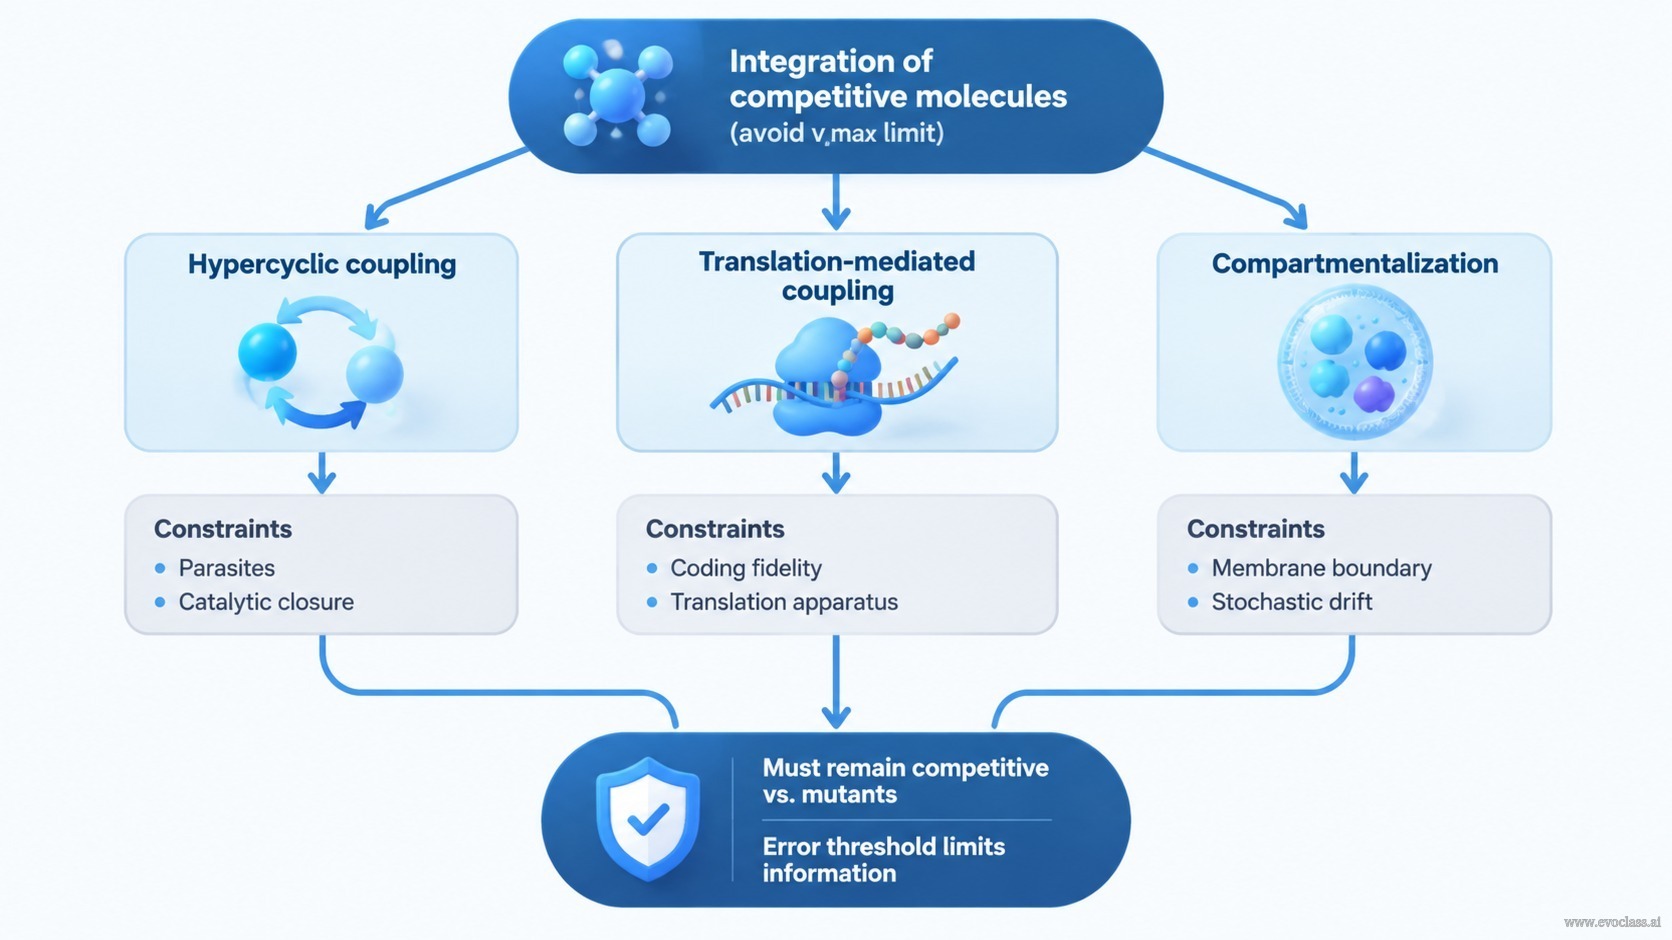
- 超循环耦合:基因通过一个闭合的催化循环相互连接,因此每个基因的复制都依赖于其他基因的产物。这在超循环层面形成了选择单元,但它仍然容易受到寄生突变体的影响,并且需要催化闭合。
- 翻译介导的耦合:基因编码具有功能活性的蛋白质(例如复制酶或合成酶),这些蛋白质催化复制或翻译。这允许分工,并且能够整合比单个 RNA 基因组更多的信息,但它需要一套编码装置,并面临保真度约束。
- 区室化:协作性基因被包裹在一个共同的区室(原细胞)中,因此选择作用于整个区室。这可以稳定整合并限制寄生物利用,但它引入了边界维持、随机效应以及协调复制的约束。
这些路径并非相互排斥。早期演化可能结合了超循环组织、翻译和区室化,以实现整合基因组。共同的约束是,每条路径都必须保持在误差阈值之内并管理突变负载:整合是一个选择性问题,而不仅仅是物理上的结合。
通往整合的三条路径该图展示了一个核心的整合问题,它分化为超循环耦合、翻译介导的耦合和区室化三条路径。从每条路径出发的箭头都指向共同的约束:对突变体保持竞争力,并保持在误差阈值之内。
通往整合的三条路径
该图展示了一个核心的整合问题,它分化为超循环耦合、翻译介导的耦合和区室化三条路径。从每条路径出发的箭头都指向共同的约束:对突变体保持竞争力,并保持在误差阈值之内。