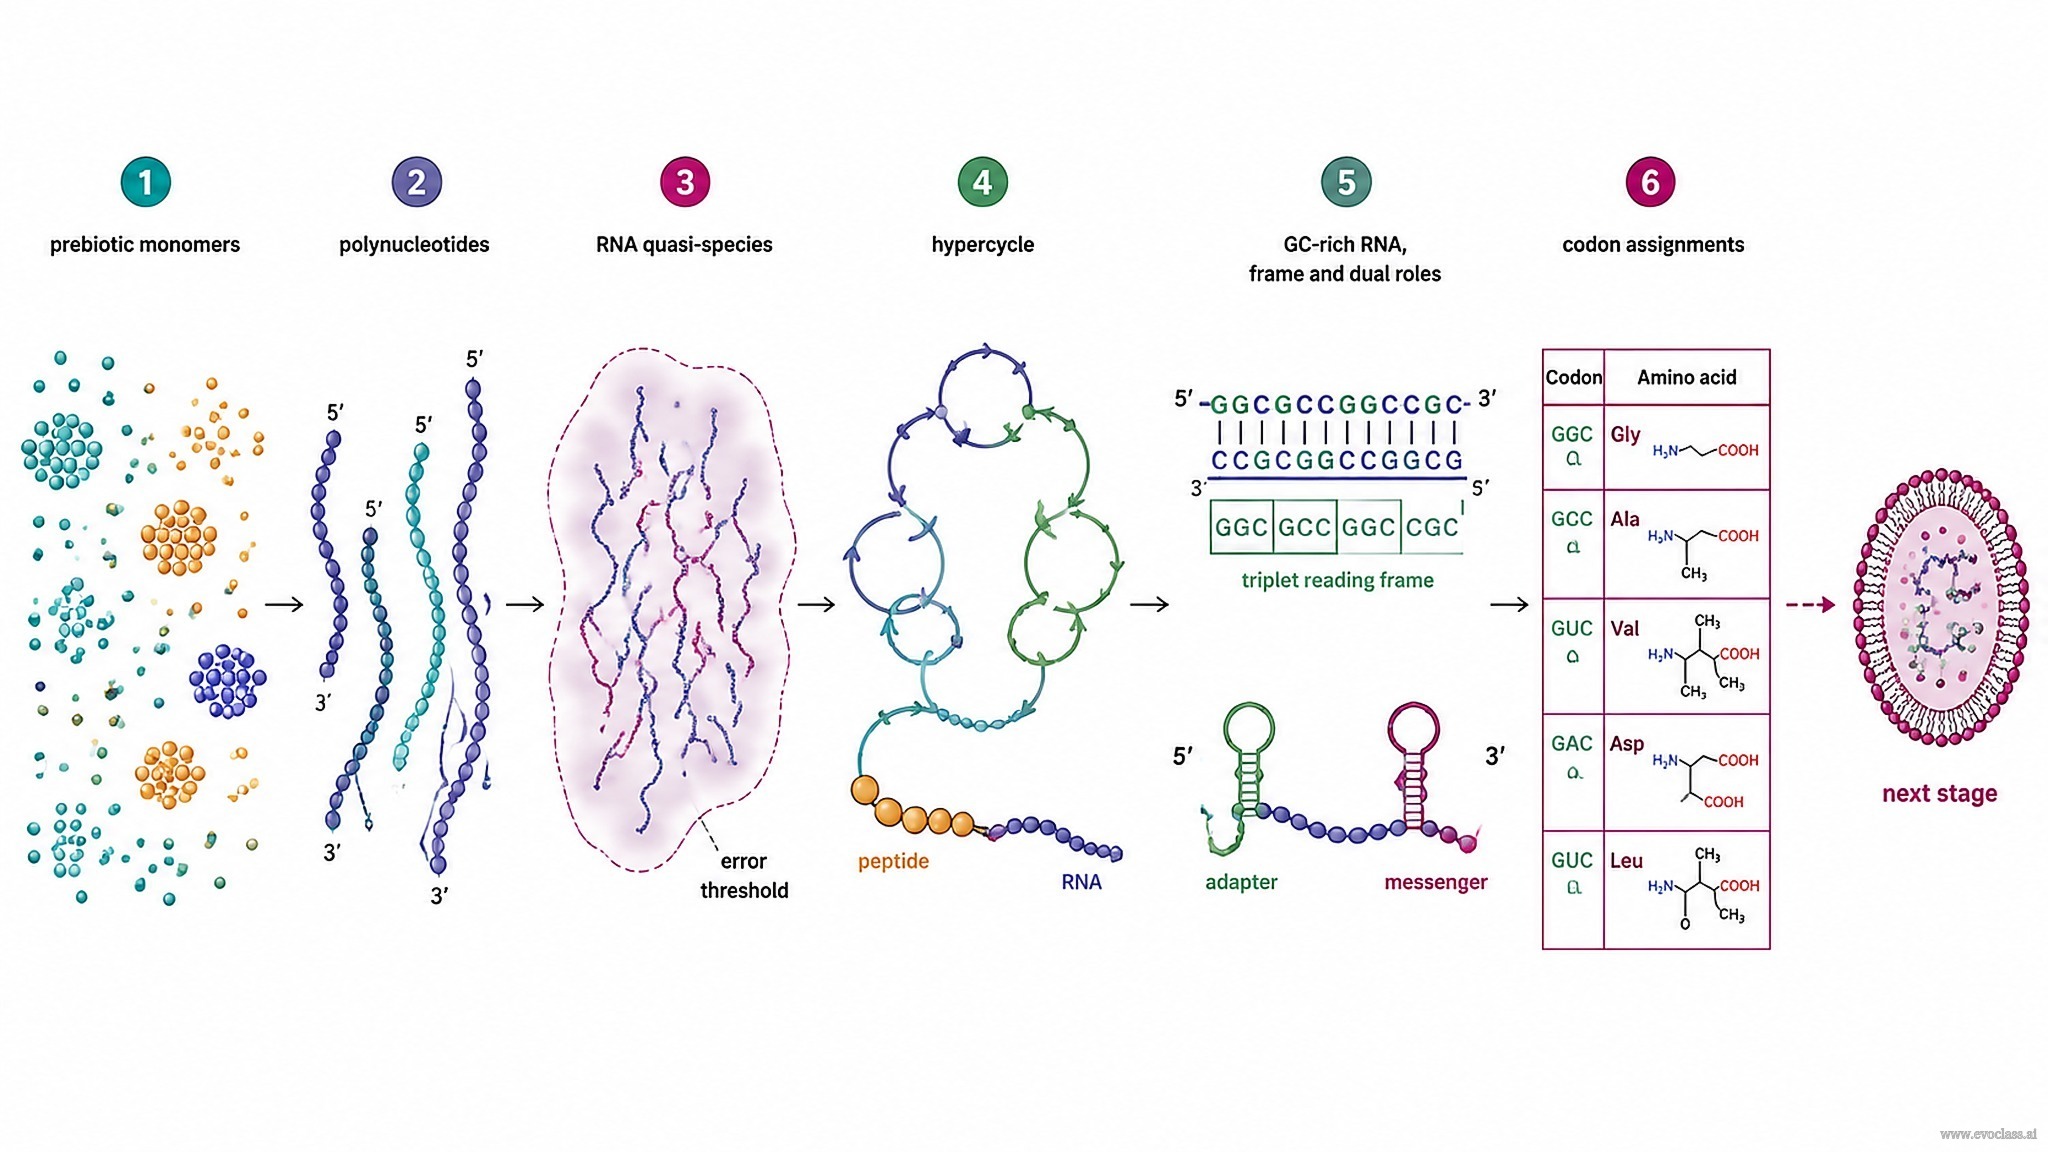
本页梳理了所提出的 从生命起源前的生物大分子到最早密码子分配的连续性。这里所主张的并不是某个单一事件造就了遗传密码,而是一系列物理与信息层面的步骤逐步压缩了可能分配的空间,最终只剩下少量可行且可运作的三联体—氨基酸对应关系。
1. 非随机的起始分子库
生命起源前的合成并不会产生均匀的混合物。氨基酸与核苷酸以高度 非随机的丰度积累,而这些偏向会向上传递:凡是数量丰富且稳定持久的单体,才是真正能被最早编码相互作用所捕获的对象。决定最初选择范围的,是可获得性而非优化程度——任何分配都必须从这个范围内产生。
2. 多核苷酸是准物种群体,而非单一分子
早期多核苷酸并非以单一优化序列的形式演化,而是以 准物种的形式存在:一团相互关联的变体,处于突变—选择平衡之中。其信息容量受错误阈值限制——若每位点突变率过高,主序列便会消解为平坦而缺乏信息量的突变体分布。复制保真度低还会带来突变负荷,从而抑制较长分子的维持。因此,早期编码是从受错误阈值限制的短序列开始的,而非始于一个长的原基因组。
3. 功能耦联与超循环组织
将 RNA 催化与肽的功能相耦联,可使原本相互竞争的复制子彼此支持。 超循环组织 正是整合这些功能、应对标准质疑的所提方案,这些质疑包括:成核(循环究竟如何开始)、寄生者(不做出贡献却利用循环的更短物种)以及信息丢失。耦联在基因组尚未出现之前便稳定了类编码相互作用。
4. 塑造早期编码的约束条件
- 富含 GC 的复制 使可及的序列空间偏向富含 G/C 的模板。
- 无逗号阅读框 可避免移码歧义,因此只有特定三联体编码才能在没有分隔符的情况下被读取。
- 双重功能 RNA:同一分子既可作为携带氨基酸的接头,又可作为被读取的信使,因此任何分配都必须同时满足这两种角色。
5. 最早的分配及后续路径
在这些约束条件下,最早的密码子分配很可能涉及类 GGC/GCC 三联体,与 相对丰富的脂肪族氨基酸相匹配。这一转变是渐进式的,而非跳跃式的:它以受错误阈值限制的信息、催化闭合为前提,而区室化则要更晚才出现,它将基因组统一在单一边界之内,从而形成整合的原细胞。
模型定位
本论述给出的是合理的路线与约束条件,而非确定性的历史顺序。密码子分配是通向区室化超循环与整合原细胞途中的一个涌现性、受约束限制的步骤,满足相同约束条件的其他分配方案依然是可以设想的。
小结目标: 能够复述所提出的事件顺序——生物大分子与准物种,然后是密码子分配,接着是区室化超循环,最后是整合的原细胞。
从生物大分子到密码子分配一条线性连续路径:非随机的生命起源前单体库为多核苷酸库提供来源,这些多核苷酸库以 RNA 准物种的形式持续存在,处于受错误阈值约束的突变—选择平衡之中。随后,功能性 RNA—肽耦联与超循环组织支撑起富含 GC 的无逗号阅读框,其中包含兼具接头与信使双重功能的分子,最早的密码子分配正是由此涌现——而区室化超循环、整合的原细胞以及统一的基因组被标示为下一阶段,而非本步骤的组成部分。
从生物大分子到密码子分配
一条线性连续路径:非随机的生命起源前单体库为多核苷酸库提供来源,这些多核苷酸库以 RNA 准物种的形式持续存在,处于受错误阈值约束的突变—选择平衡之中。随后,功能性 RNA—肽耦联与超循环组织支撑起富含 GC 的无逗号阅读框,其中包含兼具接头与信使双重功能的分子,最早的密码子分配正是由此涌现——而区室化超循环、整合的原细胞以及统一的基因组被标示为下一阶段,而非本步骤的组成部分。