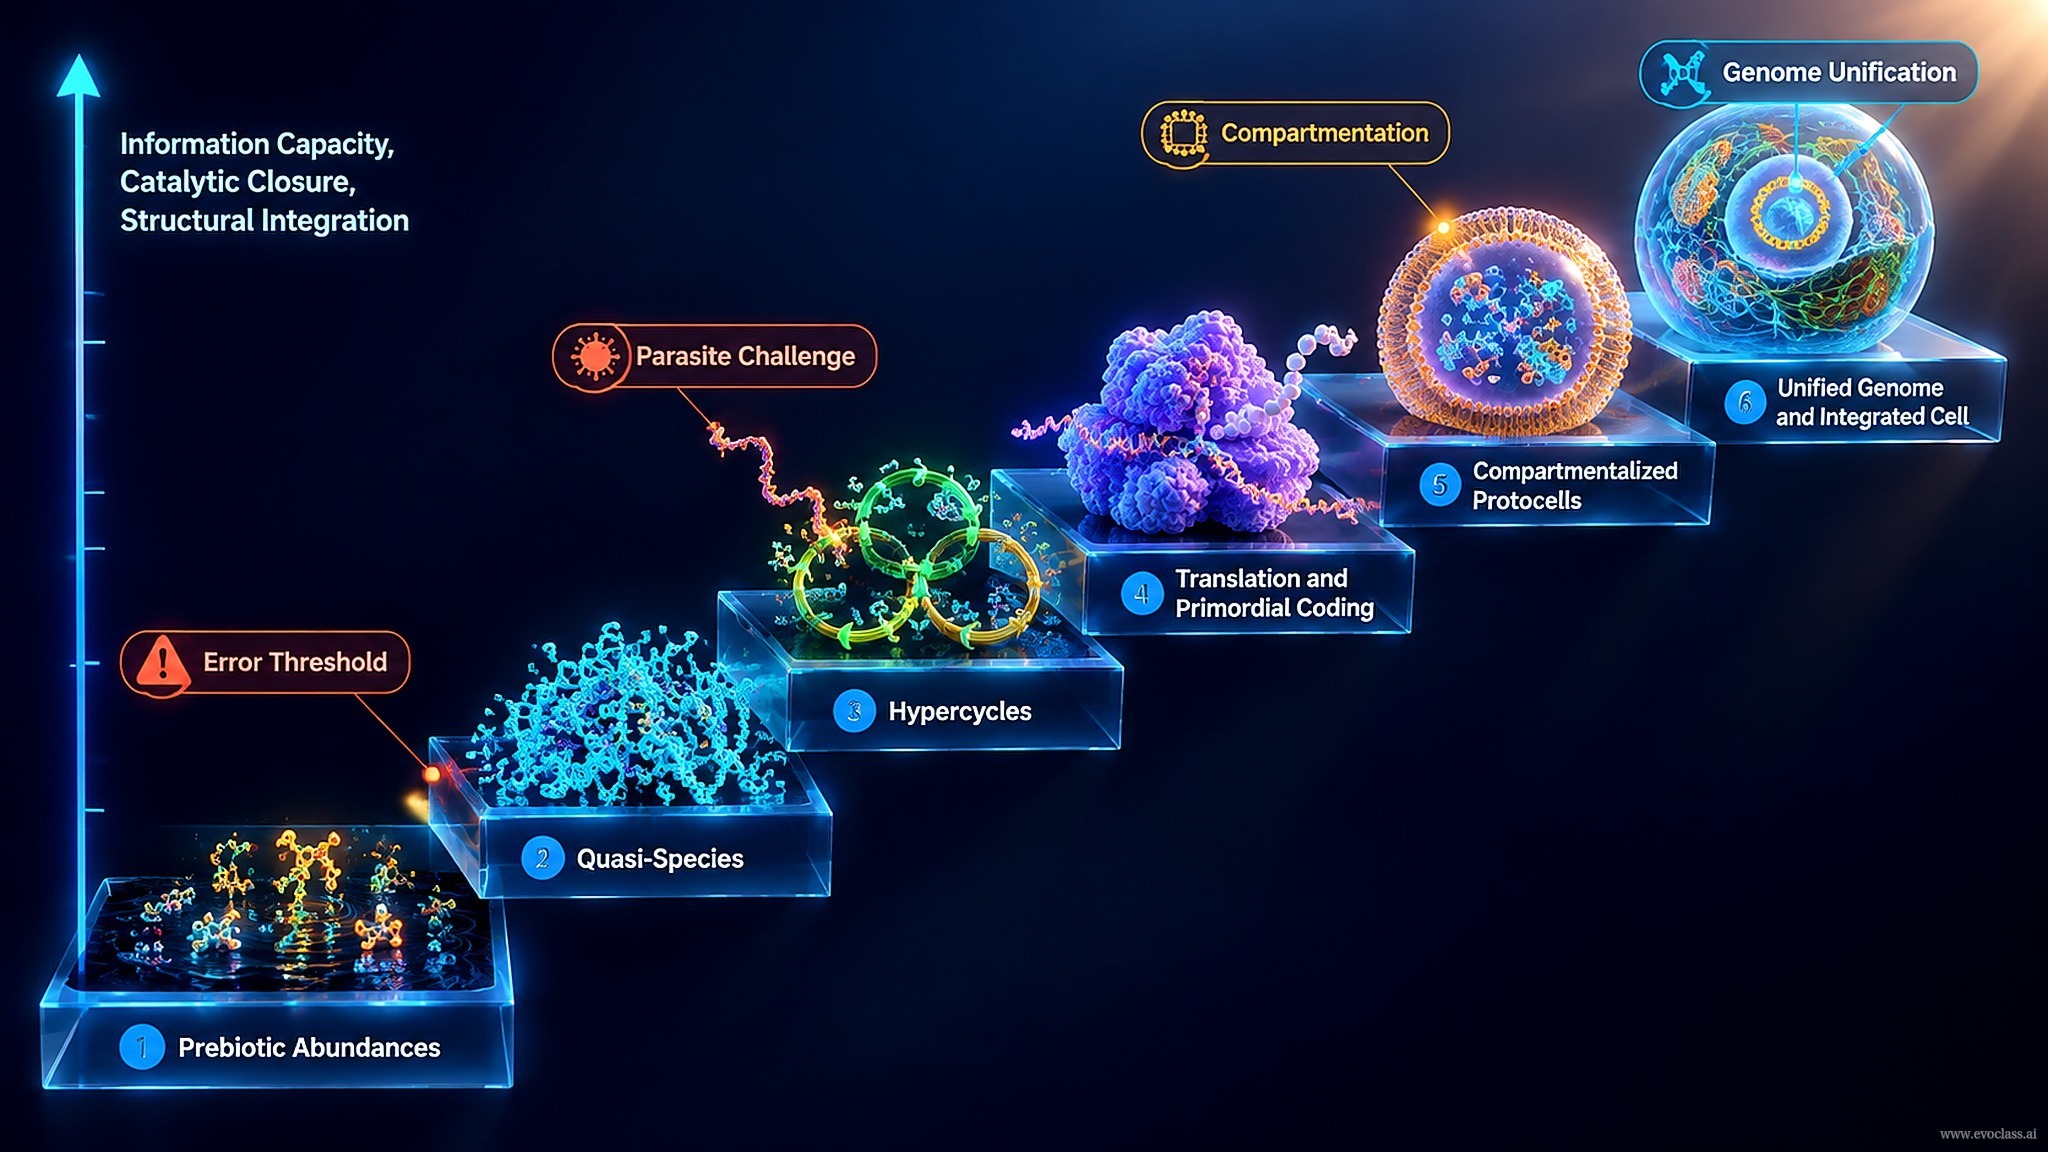
整合细胞并非独立于生命之外的另一种起源,而是分子自组织连续、分阶段延伸的终点。每一个阶段都解决了特定的信息、催化或寄生问题,而达尔文选择始终在分子层面持续运作。
- 阶段 1 — 前生命原材料: 前生命合成生成具有非随机丰度的氨基酸和多核苷酸;诸如富含 GC 的复制等组成偏好,制约了最早期的复制子。
- 阶段 2 — 准物种: 突变与选择产生准物种群体,其稳定信息含量受复制保真度和错误阈值限制;q̄m、σm 和 vm 可预测信息的丢失或维持。
- 阶段 3 — 超循环整合: 催化、自催化和超循环耦合将复制子联结为具有一致性生长的协作循环;寄生者、突变负荷和成核失败界定了超循环组织的极限。
- 阶段 4 — 翻译与原始编码: RNA 适配体/信使、无逗号框架、早期 GGC/GCC 密码子以及无核糖体的肽转移,将超循环扩展到编码的功能性多肽。
- 阶段 5 — 区室化: 区室化的超循环与原细胞将耦合的复制与翻译局限在局部,抑制寄生剥削,并在现实的边界条件下形成更高层次的选择单位。
- 阶段 6 — 基因组统一: 多个超循环复制子被整合为一个统一的基因组;DNA 校对、重组以及保真度的提高改变了错误阈值,使更大的整合细胞成为可能。
连续性原则: 这些转变并非各自独立的起源,而是催化闭合、信息容量和结构整合的逐级增加;错误灾难、寄生剥削和联合功能失效等失败模式标志着后续阶段必须跨越的边界。
结合选择理论的形式化综合: 不动点与雅可比分析、极限环、Hopf 分岔以及耦合机制,描述了整合同何时稳定、何时崩溃。Qβ 噬菌体诱变实验展示了突变体分布与错误阈值,而句子演化博弈则揭示了保真度如何限制信息;DNA 校对和重组随后放宽了这一限制,有助于解释统一的基因组如何从早期 RNA/蛋白质超循环中产生。
从多核苷酸到整合细胞的连续性从前生命丰度到统一基因组的六级阶梯,纵轴标示出信息容量、催化闭合和结构整合的增长;标注框标明了错误阈值、寄生者挑战、区室化和基因组统一。
从多核苷酸到整合细胞的连续性
从前生命丰度到统一基因组的六级阶梯,纵轴标示出信息容量、催化闭合和结构整合的增长;标注框标明了错误阈值、寄生者挑战、区室化和基因组统一。