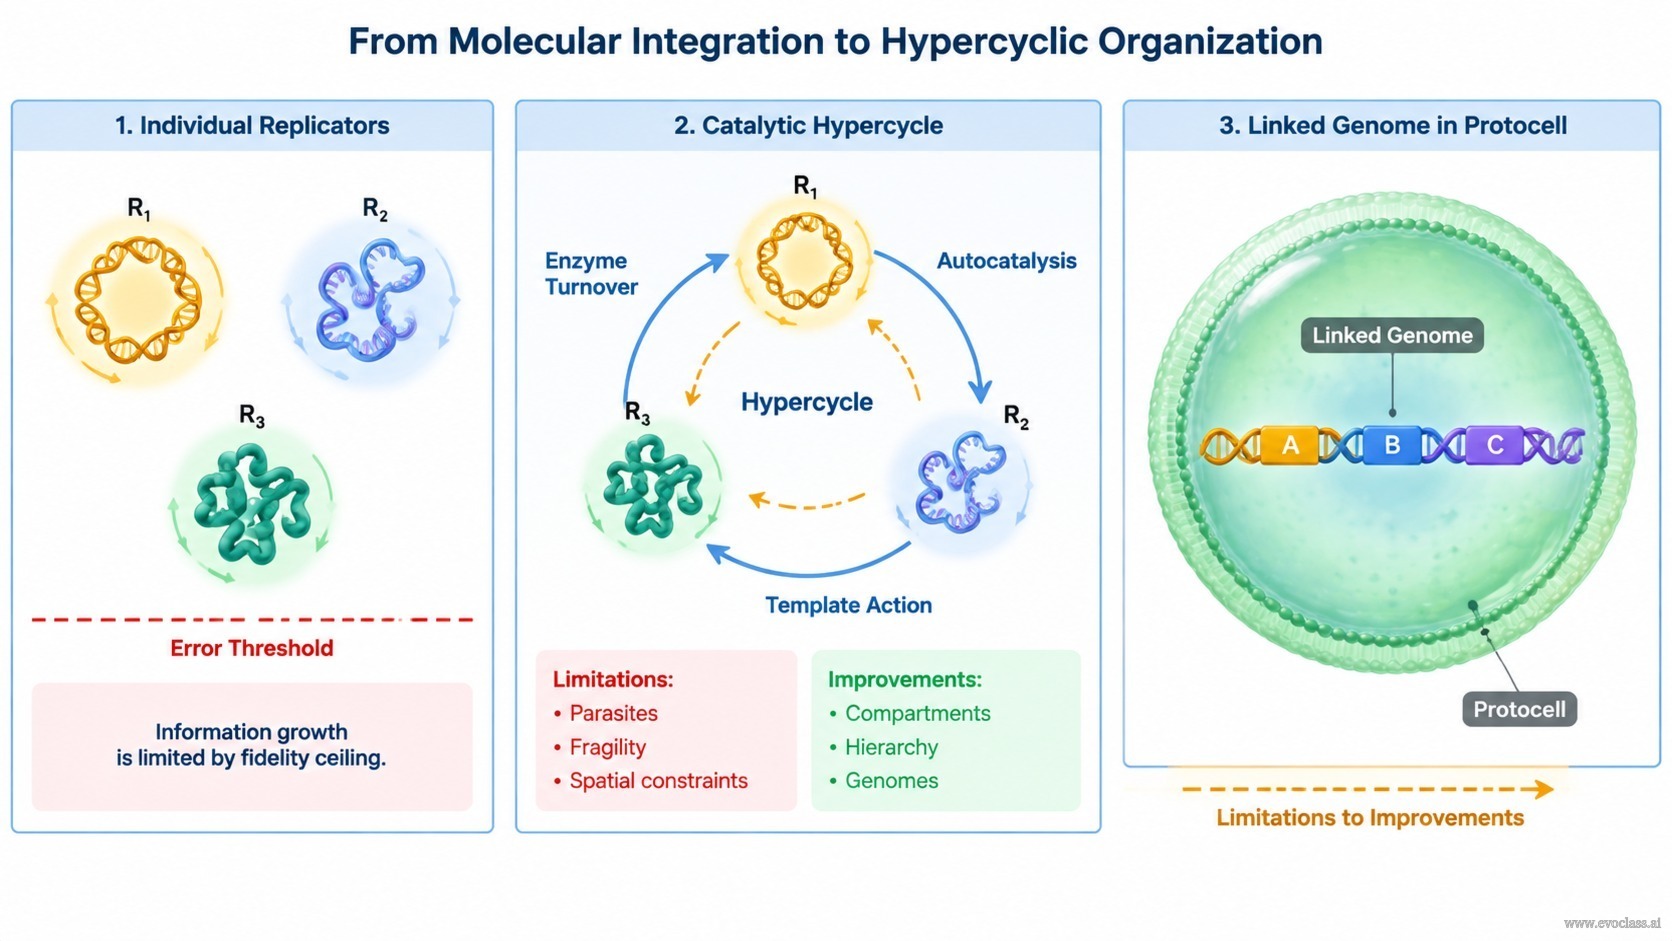
本投影片捕捉了早期分子演化中的一個決定性轉折:當單一自我複製單元再也無法承載足夠的資訊時,選擇會傾向於 整合數個自我複製實體。原因在於 錯誤閾值。複製體的複製保真度為序列長度設下了上限,超過此上限便無法抵抗突變衰變。一旦超過該上限,在單一單元中產生更多資訊便會適得其反,因為大多數複製品都是錯誤的,主序列因而喪失。
超循環組織 透過將多個自我複製單元耦合為一個封閉的協作催化網路,解決了這項限制。在此網路中,每個單元透過催化循環、自催化、模板作用與酵素周轉來支持其他單元的複製。成為篩選單位的並非任何單一分子,而是這個集體,也就是 篩選單位。因此功能性整合起初並不要求基因在物理上連接起來;它只要求它們的催化產物能回饋到網路成員的複製過程中。
為何功能性耦合先出現
在基因組以連結結構存在之前,選擇就能作用於一組以催化方式合作的複製體。超循環將獨立競爭者轉化為協作網路,能夠維持比任何單一成員獨自所能維持的更多集體資訊。這也可能為早期與轉譯相關的功能提供一條途徑,因為數個類 RNA 單元可以各自貢獻不同的催化或編碼角色,而無需讓任何單元超出其保真度上限。
從功能性整合到結構性整合
隨著基因組演化,功能性耦合可以被基因的完全結構性整合所取代。即使是已知最原始細胞的基因組也是結構單元。結構性連結使協作組合變成單一可遺傳實體,降低對可擴散催化耦合的依賴,並能保護合作的基因免於遺失或被個別利用。
突變譜的理據
一個核心問題是:為何要採用許多單一突變基因的超循環組織,而非一個穩定成長的基因組?對於一組 100 個基因而言,k 錯誤突變體的數目為
限制與改善
超循環組織並非最終解決方案。它可能間接、動態上脆弱、易受寄生或自私複製體侵害,並依賴空間或區室限制。改善方式包括區室化、階層式超循環,以及最終的結構化基因組形成。這些改變能穩定合作並降低對可擴散催化耦合的依賴。
重點: 超循環是自然自組織的一項中間原理:它透過催化合作連結自我複製單元,使集體能維持超越任何單一複製體極限的資訊,並為結構性整合的基因組鋪路。
從分子整合到超循環組織階段 1 顯示受保真度上限限制的個別自我複製單元;階段 2 顯示催化循環、自催化、模板作用與酵素周轉形成封閉的超循環網路;階段 3 顯示功能性耦合被原生細胞中結構性連結的基因組所取代,並以琥珀色虛線箭頭標示其限制與穩定化的改善。