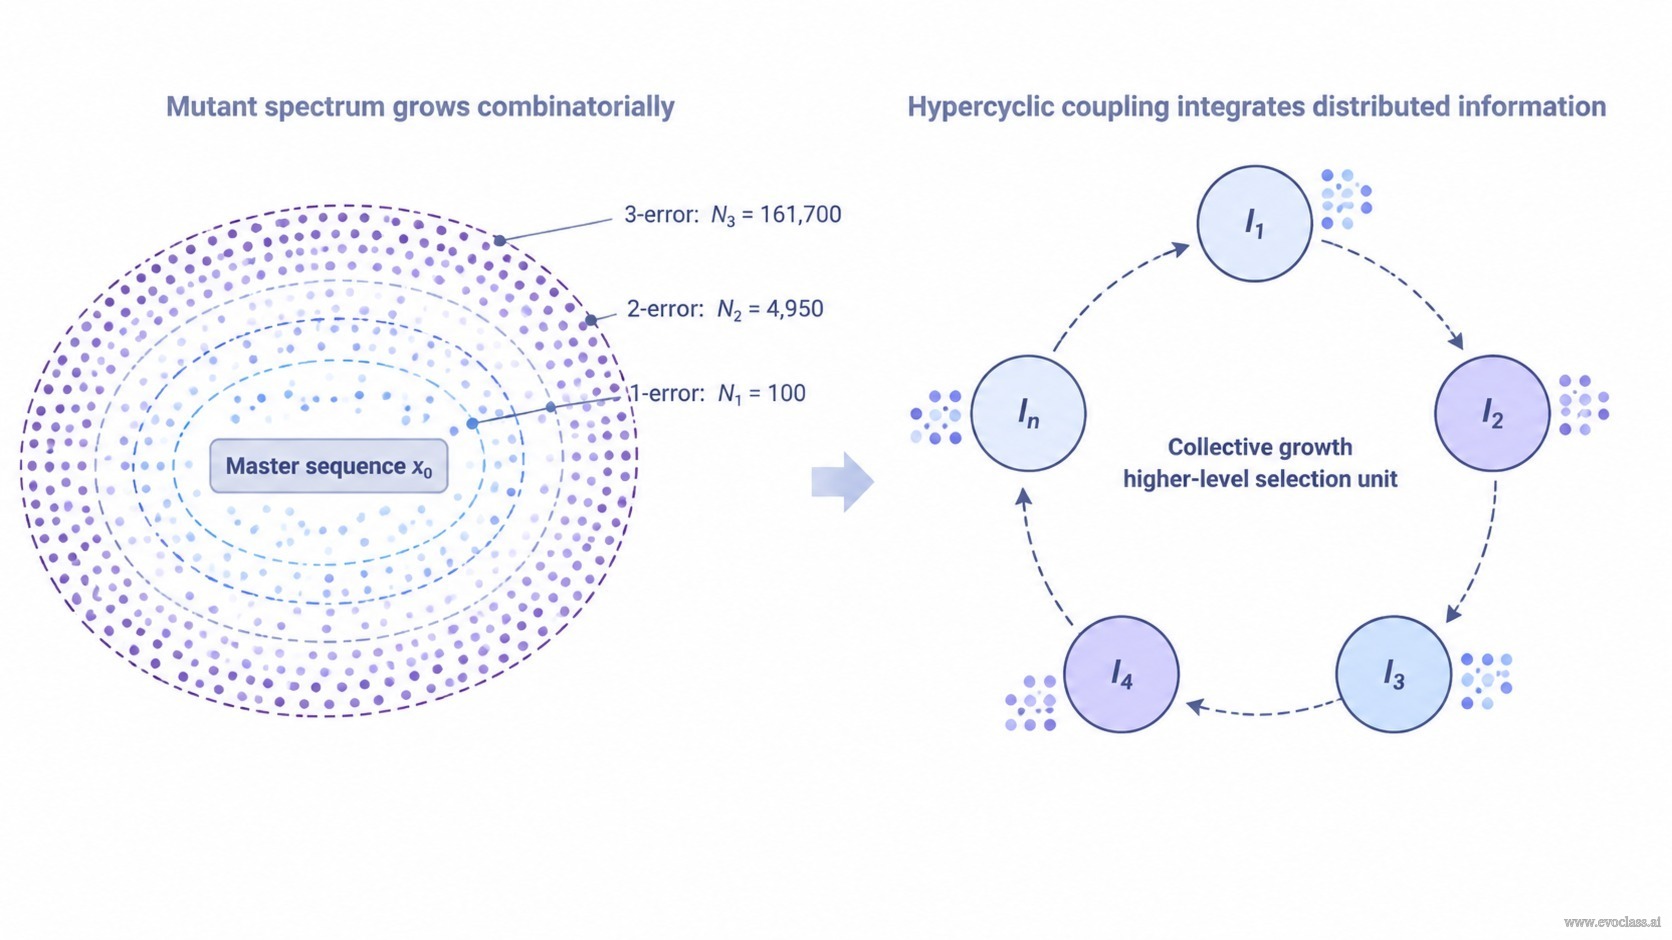
「 錯誤閾值 」限制了單一穩定增長的基因體所能維持的資訊量。複製過程永遠不會完全精確,因此每一輪複製都會在主序列周圍形成一個 突變譜 ,包含單一錯誤、雙重錯誤、三重錯誤及更高階的變異體。在突變—選擇平衡下,這個突變譜並非微不足道的干擾:選擇作用於整個有組織的分布——即 準物種 ——而非作用於某一個特殊分子。
擊敗單一基因體的,正是這個突變譜的算術——它隨基因體長度以組合方式增長。以一個 100 個核苷酸的基因體為例:
一般形式:
由此產生三個後果。第一,相較於主序列本身,突變雲極為龐大:當基因體長度或突變率上升時,突變雲會淹沒主副本,跨越錯誤閾值,使所編碼的資訊逐漸劣化。第二,單一穩定增長的基因體無法整合這種多樣性——其複製子彼此競爭,較快或較短的變異體會勝過主序列,而作用於個別分子的選擇沒有任何機制能將整個突變集合維持為一個穩定的單位。
超循環組織所帶來的作用
超循環組織透過催化相互依賴將不同基因連結起來,以此回應這個問題。每個基因的產物催化下一個成員的複製,形成封閉循環 I1 → I2 → … →
- 循環耦合:催化依賴將獨立的競爭者轉化為一個合作網絡,因此沒有任何單一快速變異體能輕易接管整個族群。
- 分散式功能:資訊分散於多個成員之中,因此一定程度的突變變異可以被吸收,而不會立即導致整合資訊的崩解。
- 更高層級的選擇單位:循環——而非個別複製子——成為其增長與繁殖決定存續的對象。
此解決方案的限制
整合並非無限。超循環本身也具有錯誤閾值,且容易受到寄生成員的侵害——這些寄生者利用循環卻不貢獻催化作用。因此,超循環組織只是重新配置並分割了資訊問題,而非將其徹底消除。
檢視你的推理
如果某個被提出的網絡聲稱能容納遠多於單一基因體的資訊,請用兩個問題來檢驗它:這個網絡是否有自己的錯誤閾值?寄生成員能否入侵它?只要其中一項為「是」,就表示其增益是有限的,而非無限。
為何突變基因要進行超循環組織左側,一個 100 個核苷酸的主序列被其突變譜所環繞,其規模以組合方式增長:100 個單一錯誤突變體、4,950 個雙重錯誤突變體、161,700 個三重錯誤突變體。右側,同樣的多樣性被分割為以封閉催化循環 I 1 → I 2 → … → I n → I 1 相連的基因,使整個網絡以集體方式增長並作為更高層級單位被選擇。關鍵結論是:超循環耦合整合了分散的資訊,而非依賴單一穩定增長的基因體。
為何突變基因要進行超循環組織
左側,一個 100 個核苷酸的主序列被其突變譜所環繞,其規模以組合方式增長:100 個單一錯誤突變體、4,950 個雙重錯誤突變體、161,700 個三重錯誤突變體。右側,同樣的多樣性被分割為以封閉催化循環 I 1 → I 2 → … → I n → I 1 相連的基因,使整個網絡以集體方式增長並作為更高層級單位被選擇。關鍵結論是:超循環耦合整合了分散的資訊,而非依賴單一穩定增長的基因體。