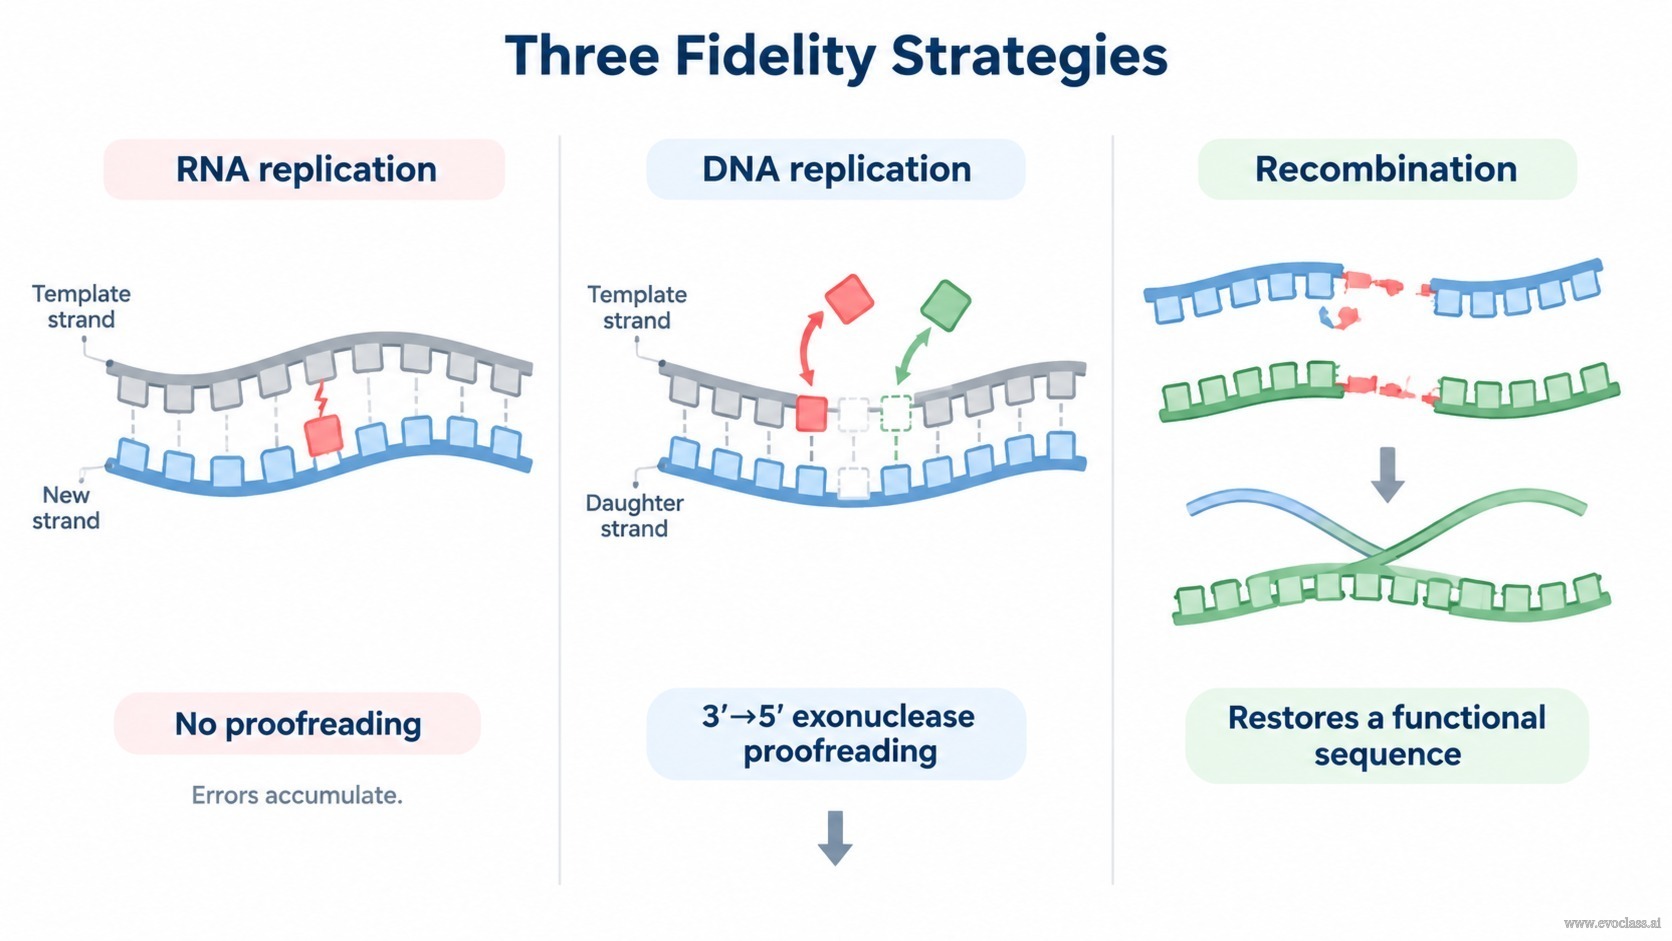
三種截然不同的策略決定了複製子能保留多少資訊:RNA 複製本身的內在精確度、DNA 複製額外加入的外切酶校對,以及重組——它在模版與族群的層級上編輯資訊,而非在單一鹼基對的層級上運作。三者共同決定了有效突變率,因而也決定了錯誤閾值落於何處,以及準物種能維持多麼穩定。
RNA 複製:無校對的快速複製
RNA 複製酶通常缺乏 3′→5′ 外切酶結構域,僅能延伸正在生長的股鏈。因此,錯誤嵌入的核苷酸既不會被辨識,也不會被移除:複製是單一、非編輯式的合成步驟,錯誤會被帶入子股之中。結果便是偏高的每鹼基錯誤率,約為每複製 10⁴ 個鹼基出現一個錯誤。由於無錯誤子代的比率會隨基因體長度增加而衰減,長基因體無法被維持,因此 RNA 基因體始終保持精簡,並緊鄰錯誤閾值。Qβ 噬菌體的誘變實驗正好說明了這個狀態:族群並非呈現單一清晰的野生型序列,而是以主序列為中心、廣布分布的突變雲。
DNA 複製:校對換來更長的基因體
DNA 聚合酶通常帶有 3′→5′ 外切酶活性,可檢查新加入的 3′ 末端。一旦偵測到錯配,該酵素便會反向水解不正確的核苷酸,之後才繼續延伸,因此錯誤被移除、正確的鹼基被插入。在鹼基配對選擇性之上再疊加校對機制,可使錯誤率下降兩到三個數量級。就錯誤閾值而言,較高的每鹼基準確度 q 會提升天擇所能維持的最大基因體:在 νmax ≈ ln σm ⁄ (1 − q) 之下,較低的錯誤率 (1 − q) 會放寬限制,允許更大的基因體穩定遺傳。失去校對能力的 DNA 聚合酶外切酶突變株,正好表現出預期中的突變率上升與有效基因體縮小。
重組:模版層級的修復與重組分配
重組並不會改善聚合酶活性位點的鹼基配對。它作用於模版與族群,而非單一鹼基。同源重組可以由兩條受損情形不同的模版重建出完整序列;模版切換可挽救停滯或充滿錯誤的複本;重組分配則能將有利變異組合到同一背景,同時清除有害變異。其效益取決於共同感染、可用的同源性與天擇強度,因此從準物種的觀點來看,重組改變的是有效突變負荷與族群層級的突變—天擇平衡,而非每鹼基錯誤率本身。
錯誤閾值與準物種的後果
RNA 的高錯誤率限制了 νmax,使族群緊鄰錯誤閾值;DNA 校對降低錯誤率並放寬該限制;重組則可降低有效突變負荷或重新生成適存序列,改變天擇所作用的變異分布。比較性原則於焉而生:RNA 精確度有利於快速變異與精簡資訊,DNA 校對有利於基因體擴張與穩定遺傳,重組則有利於族群層級的修復與模組化創新。這些是互補而非互斥的策略,真實的複製子會以不同程度將它們結合起來。
比較性原則。 RNA 精確度:快速變異、精簡基因體、高錯誤負荷。DNA 校對:錯誤率降低數個數量級、νmax 提升、大基因體穩定遺傳。重組:鹼基配對準確度不變,但具備族群層級的修復、重組分配與有害變異清除。
三種精確度策略左:RNA 複製嵌入錯誤配對的鹼基,且因缺乏校對而將其留在子股中,因此每鹼基錯誤率居高不下。中:DNA 聚合酶的 3′→5′ 外切酶切除錯配的 3′ 核苷酸並插入正確者,使錯誤率下降數個數量級。右:重組結合兩條受損情形不同的模版,重建出具功能的序列,在族群層級而非單一鹼基對的層級上修復資訊。