超循環組織能將數個催化單元整合為單一自我複製網路,然而這種整合是有極限的。在 質量作用、恆定組織動力學下,超循環同時面臨兩種截然不同的壓力: 自我複製型寄生體 它們獲取催化作用卻不予以回饋,以及 組合突變負荷 隨著基因組增長而迅速膨脹。兩者共同界定了超循環組織的核心極限。
濃度單體上的寄生體
考慮一個雙組分系統,其中寄生體
ẋ 的正負號在閾值處將系統區分為兩種狀態
頂點狀態與內部狀態
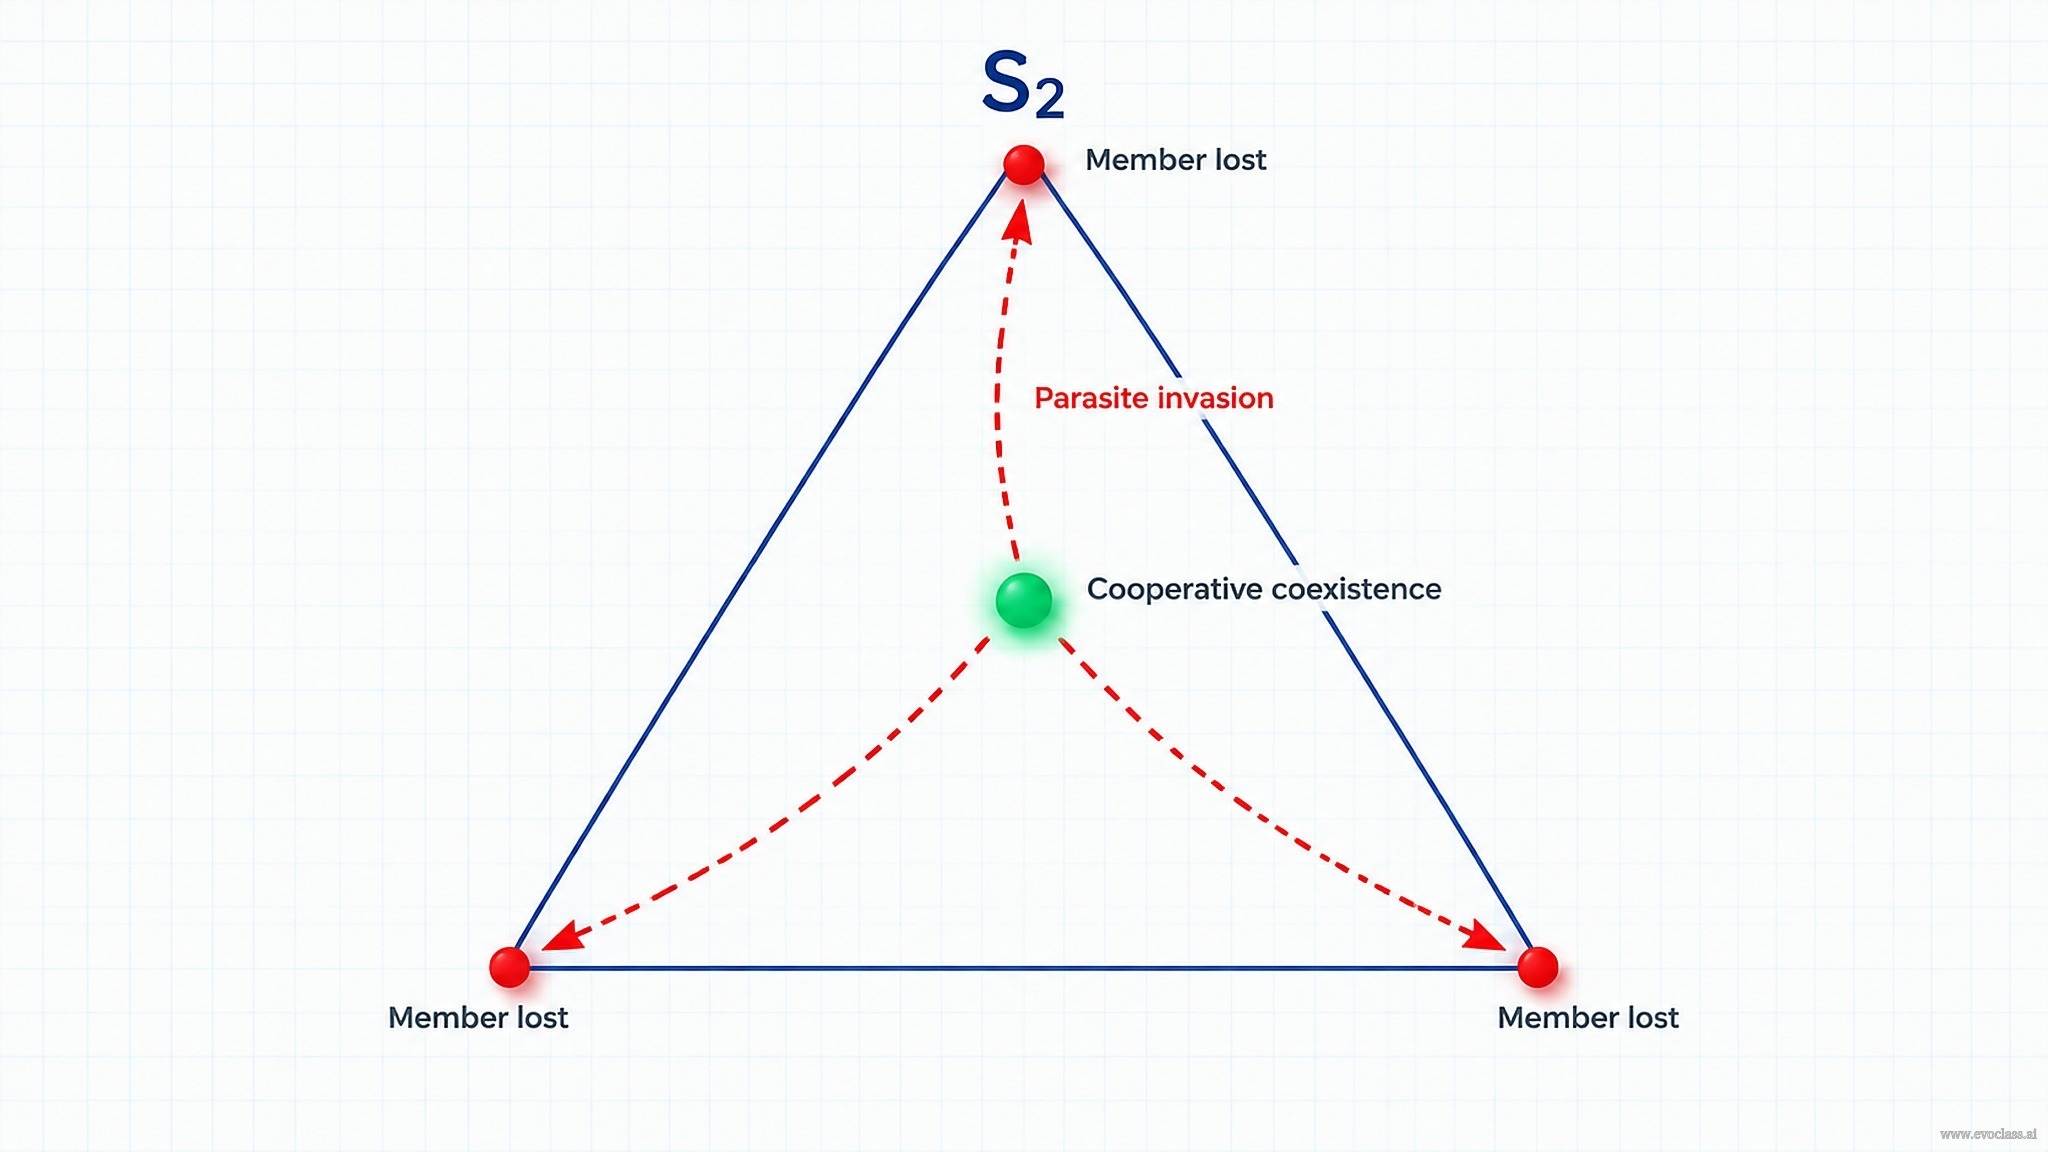
超循環允許 濃度單體頂點上的不動點,每個對應於某一組分的流失,以及一個 內部狀態 代表所有成員的合作共存。內部狀態雖具生產力卻十分脆弱:它正是寄生體入侵能將軌跡推向邊界、導致成員永久流失的區域。
基因組增長的組合代價高昂
延長基因組會急遽提高突變負擔。對於長度為 100 的序列,存在
為何結構至關重要
這些極限是在充分混合、恆定組織選擇的假設下推導而得。若缺乏額外的空間或區室結構,較大的超循環將面臨持續增加的寄生與突變壓力,內部的合作狀態也無法無限期維持。
寄生體入侵下的單體一個三角形濃度單體 S 2,其紅色頂點不動點標示個別超循環成員的流失,而綠色內部點則標示合作共存。紅色虛線箭頭顯示自我複製型寄生體將系統從脆弱的內部推向邊界。
寄生體入侵下的單體
一個三角形濃度單體 S 2,其紅色頂點不動點標示個別超循環成員的流失,而綠色內部點則標示合作共存。紅色虛線箭頭顯示自我複製型寄生體將系統從脆弱的內部推向邊界。