所謂的 錯誤閾值 是指在給定的複製保真度與選擇優勢下,原始複製子所能維持的最大穩定資訊量。對於序列長度 ν 與選擇優勢 σ,要能穩定維持,需滿足
句子演化遊戲
句子演化遊戲以三個變數形式化同一項限制條件: q̄m (複製準確度)、 σm (選擇優勢),以及 vm (序列長度)。三者共同預測一段有意義的序列能否被維持或流失。若只增加 vm 而未改善 q̄m 或 σm,系統便會越過錯誤閾值,因此唯有保真度、選擇與長度三者協同平衡,穩定資訊才能存續。
實驗依據:Qβ 噬菌體與 DNA 校對
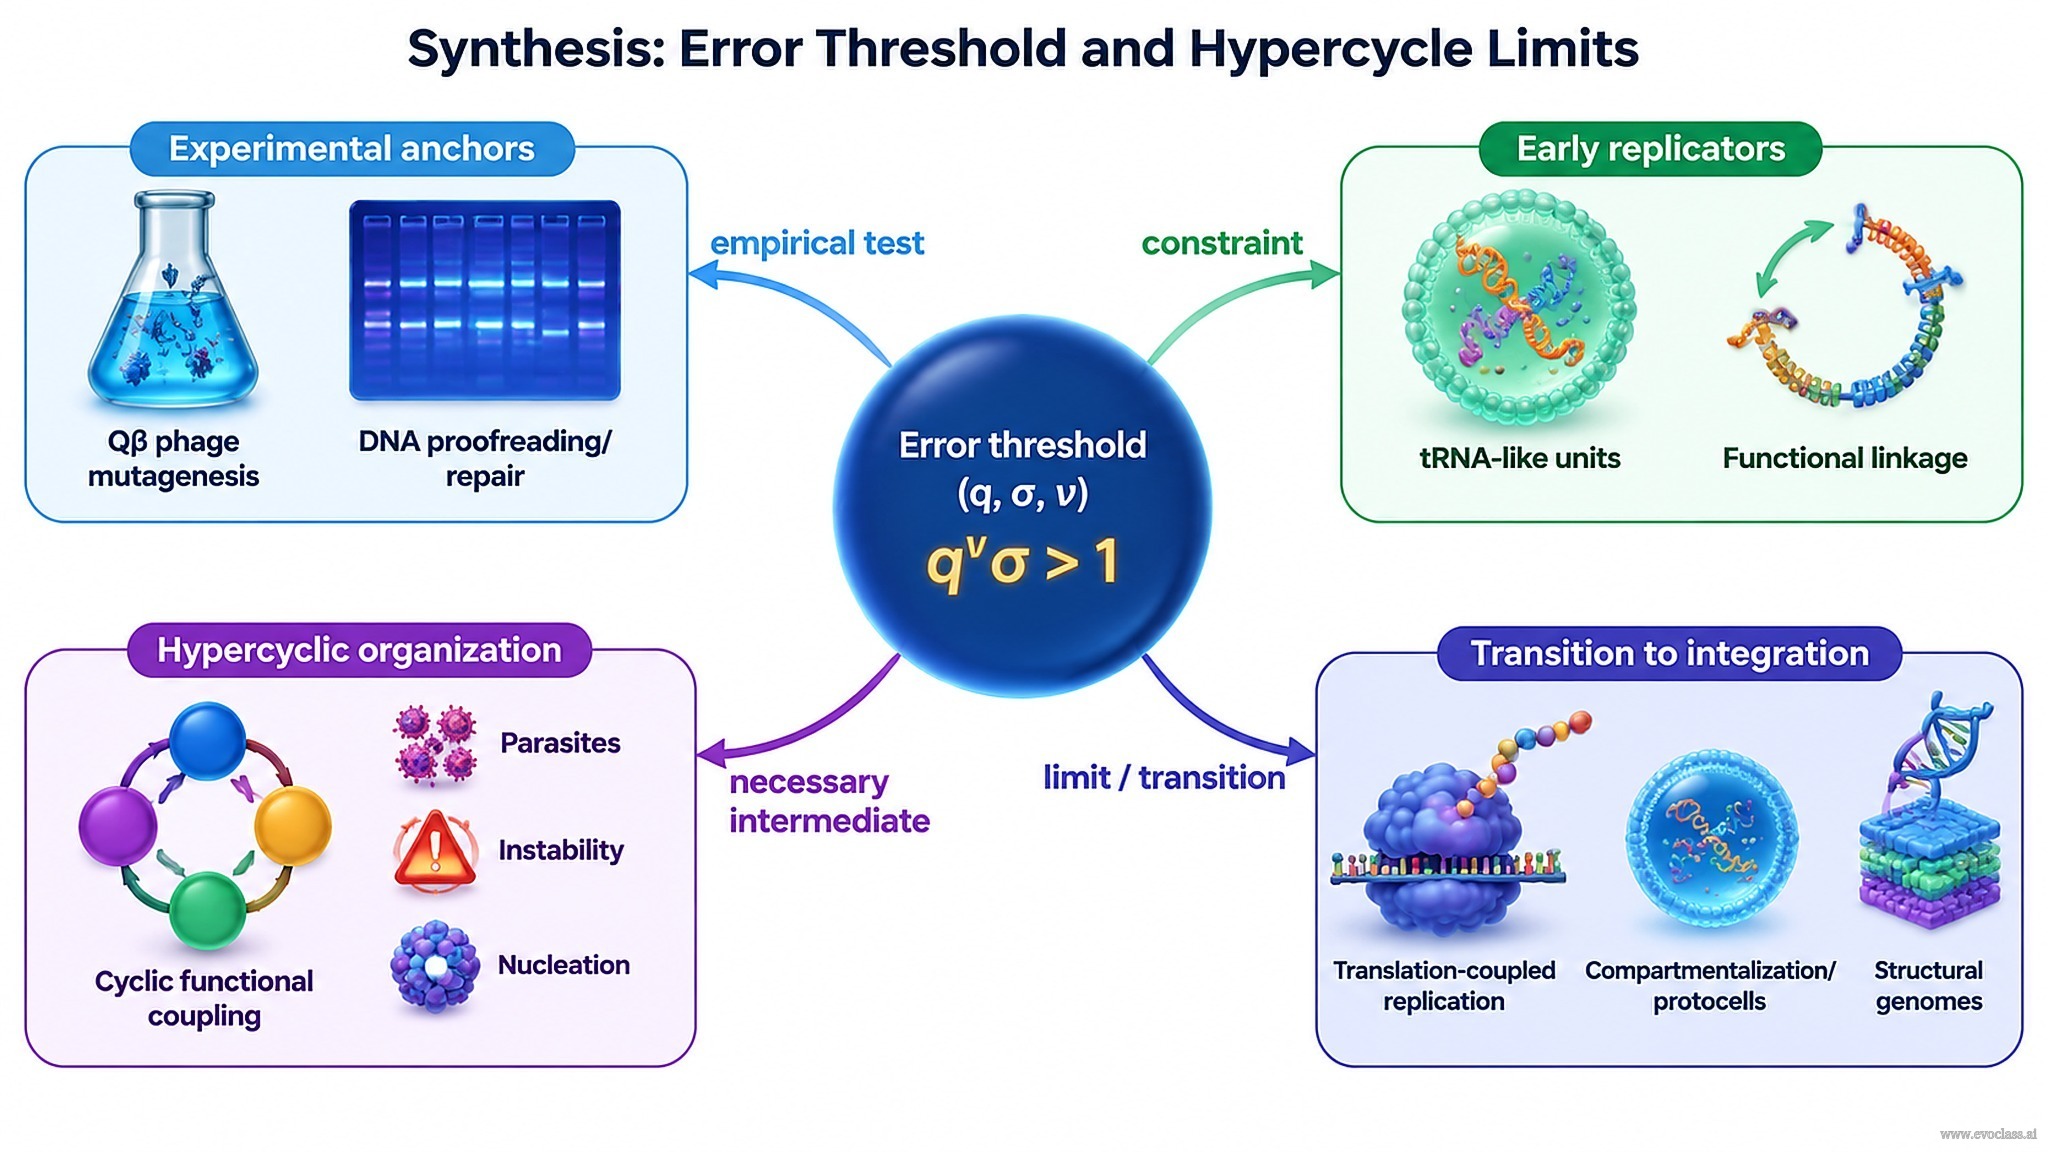
Qβ 噬菌體誘變實驗提供了實證依據:隨著突變負荷增加,突變體分布隨之擴大,野生型的優勢逐漸被侵蝕,充分展現了逼近錯誤閾值的過程。相對地,DNA 校對與修復機制能降低有效突變率 μ,使邊界位移,讓更大的穩定基因組成可能。因此,RNA 複製子往往趨近錯誤閾值,而具校對能力的生物則能維持更多資訊。
早期複製子與功能性耦合
早期複製單元很可能保持短小、類 tRNA 的型態。其保真度同時限制了編碼與催化能力,因此無法承載大型基因組。它們並非透過共價連接,而是以功能性或催化性耦合相連:每個複製子支持其他複製子的複製或活性,形成合作網絡,而非單一整合的染色體。
超循環組織:必經的中間階段
超循環組織以循環方式耦合複製子,促成集體選擇、整合更多功能,並開闢通往轉譯的途徑。因此在低保真度條件下,它是必經的中間階段。然而超循環仍有其極限:它們容易遭寄生性或自私突變體利用、依賴空間或區室結構、面臨穩定性與成核問題、可能呈現振盪或極限環動態,且無法在結構上整合所有基因。
超越超循環:轉譯、區室與結構性基因組
超越超循環的改良方式包括:轉譯耦合複製、區室化或原生細胞,以及整合為統一基因組的結構性融合。這些變化使遺傳與整個整合單元一致,讓選擇能作用於整套基因,而非鬆散耦合的各個複製子。
錯誤閾值概念圖此概念圖以錯誤閾值條件為核心,向外分支至實驗依據(如 Qβ 噬菌體誘變與 DNA 校對)、具功能性連結的早期類 tRNA 複製子、帶有寄生者與不穩定性極限的超循環組織,以及邁向轉譯、區室化與結構性基因組的過渡。箭頭標籤標示「實證檢驗」、「限制條件」、「必經的中間階段」與「極限/過渡」。