在 翻譯耦合超循環中,每個 RNA 模板不僅會被複製,還會被轉譯為多肽,該多肽透過可逆複合物形成重新結合到 RNA 上。這個結合步驟以解離常數
為何低總濃度能簡化動力學
當 RNA 與多肽的總濃度遠小於
- 游離物種佔主導。 [複合物] 遠小於 [RNA] 與 [多肽],因此動力學由游離物種而非結合物質所主導。
- 雙線性複合物濃度。 [複合物] ≈ [RNA][多肽]/Kd,亦即與兩個游離濃度的 乘積 成正比,而非與其中任一單獨成正比。
- 二級催化通量。 由於複合物即為催化劑,介導通量 kcat[RNA][多肽]/Kd ≈ (kcat/Kd)[RNA][多肽] 是二級質量作用項——正是基本超循環所使用的耦合形式。
有效速率常數與保留的拓撲結構
結合常數與催化常數僅以其組合形式出現,因此可被吸收為單一有效速率常數 keff = kcat/Kd。結果是一個具有重整化係數的基本超循環。至關重要的是,循環耦合拓撲結構得以保留:每個成員仍然催化迴路中下一個成員的複製,而轉譯在此極限下並未引入獨立的動力學耦合——它僅是重新縮放速率。這正是為何為基本超循環所建立的定點、穩定性、極限環與誤差閾值分析,只要稀釋條件成立,便能直接套用於翻譯耦合超循環;而這也正是此簡化對於選擇與誤差閾值推論如此有用的原因。
簡化失效之處
此簡化是漸近的,而非恆等式。它僅在複合物形成未飽和時才成立。當總濃度升高至接近
有效性條件
僅當 [RNA] 與 [多肽] 遠低於
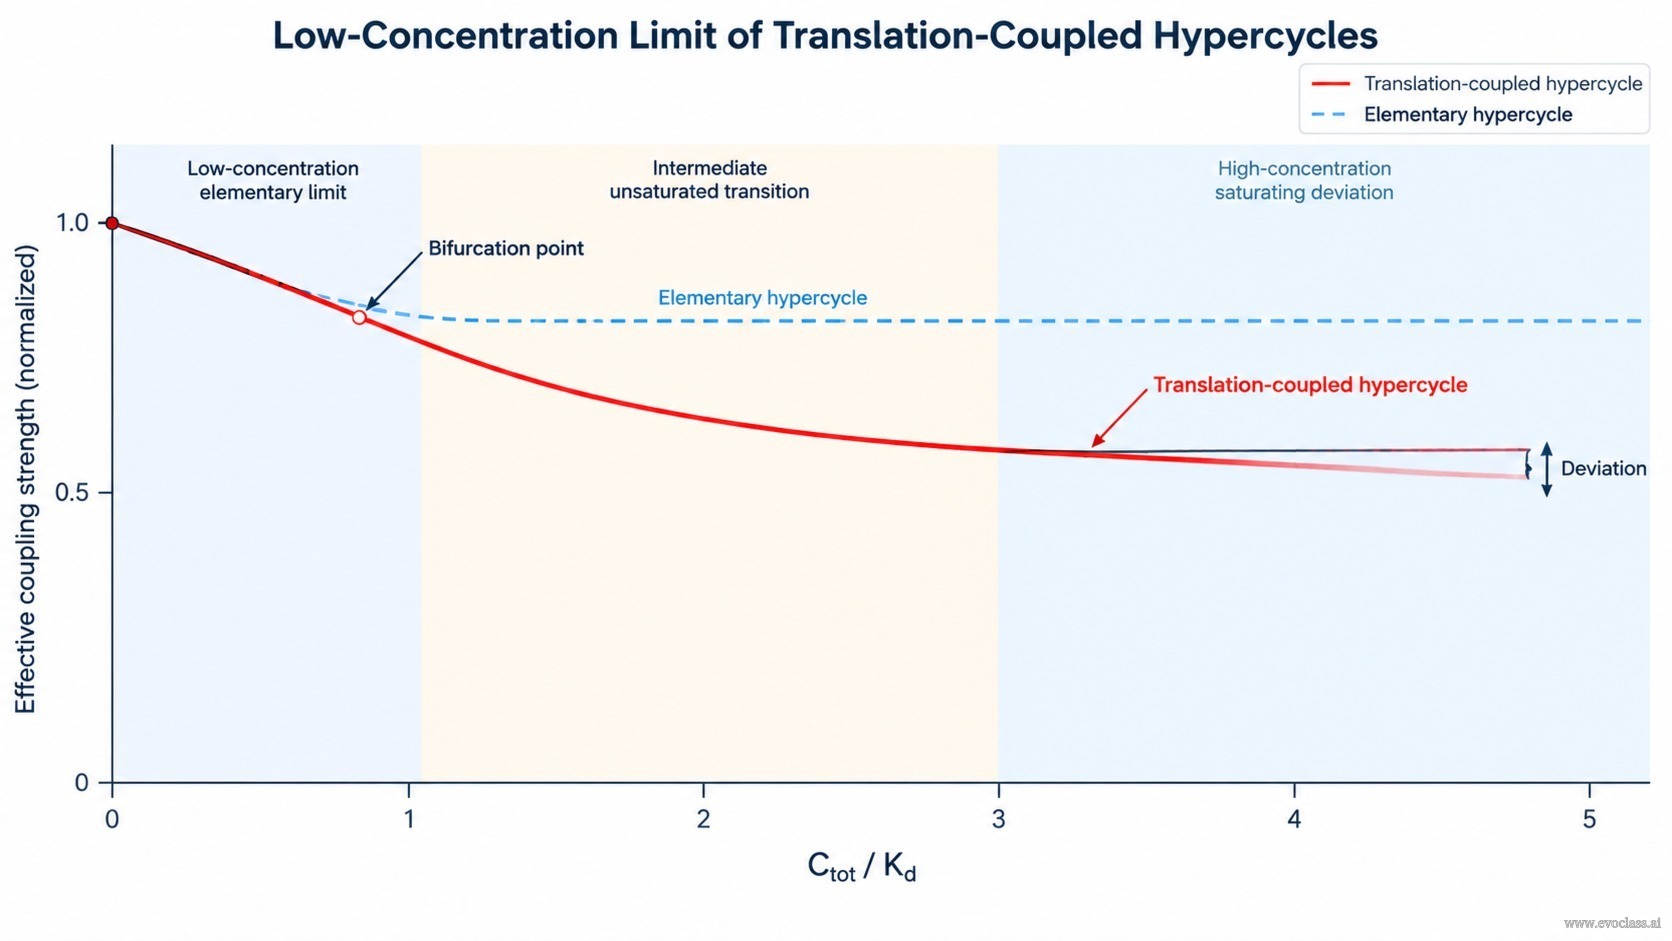
翻譯耦合超循環的低濃度極限翻譯耦合超循環的有效耦合強度對無因次總濃度 C_tot/K_d 之作圖。在低值時,實線的翻譯耦合曲線與虛線的基本超循環參考值重合,因為稀疏且未飽和的 RNA-多肽複合物產生具有有效常數 k_cat/K_d 的雙線性催化通量;隨著濃度增大,複合物趨於飽和,兩條曲線便分離。
翻譯耦合超循環的低濃度極限
翻譯耦合超循環的有效耦合強度對無因次總濃度 C_tot/K_d 之作圖。在低值時,實線的翻譯耦合曲線與虛線的基本超循環參考值重合,因為稀疏且未飽和的 RNA-多肽複合物產生具有有效常數 k_cat/K_d 的雙線性催化通量;隨著濃度增大,複合物趨於飽和,兩條曲線便分離。