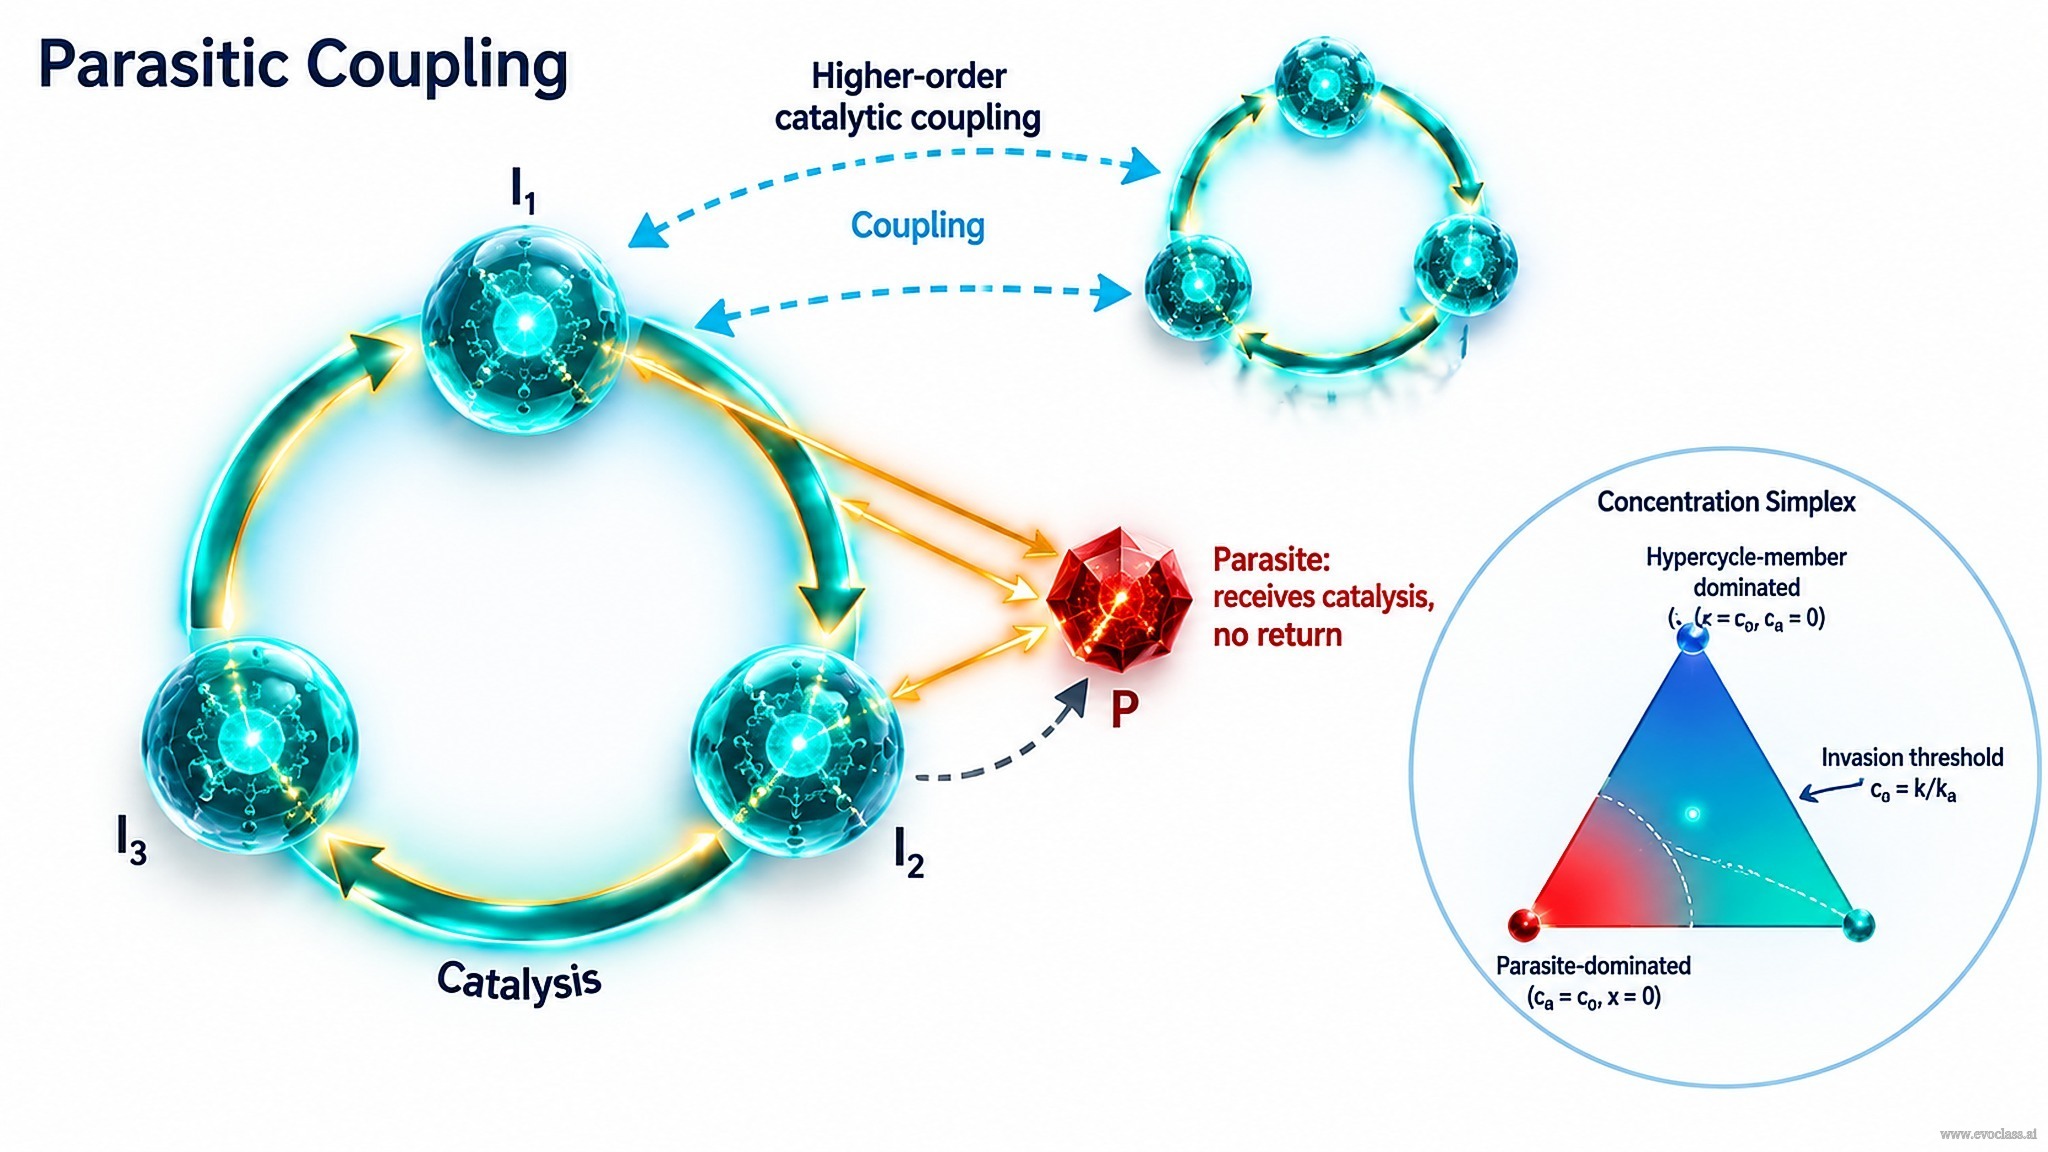
超循環組織 透過催化閉環整合了原本彼此競爭的複製子,但它仍然容易受到寄生剝削,並受制於誤差閾值與資訊量的限制。更高階的催化耦合——即超循環催化其他超循環——以階層方式擴展了這種組織,卻也帶來新的整合與寄生問題。
寄生耦合
A 寄生體 從一個或多個超循環成員接受催化支持,卻不對超循環的催化迴路有所貢獻。它利用循環,卻不回饋催化助力。對於自我繁殖的寄生體 A 與超循環成員 x 在固定總濃度下相互競爭的情形
ċₐ = kₐ cₐ² − (cₐ/c0)(kₐ cₐ² + k cₐ x)
此系統在濃度單純形 S 的角點上有兩個不動點2:寄生體優勢(cₐ = c0,
整合問題
直接連接成一個大型複製單位並不可行,因為受到 vₘₐₓ 閾值關係的限制。整合後的單位必須能與自身的突變體競爭,才能進一步演化,並避免喪失其特定資訊。所指定的整合問題問道:「除了連接成一個大型複製單位(此舉因 vₘₐₓ 的閾值關係而不可行)之外,我們如何設想競爭性分子的整合?(請注意,待整合的單位必須相對於其突變體保持競爭力,才能進一步演化而不喪失其特定資訊。)」
可能的途徑包括:
- 功能耦合:分子在不進行共價融合的情況下進行催化合作。
- 區室化:各組件共處於一個有界體積內。
- 超循環組織:競爭者透過催化循環整合在一起。
任何途徑都必須讓整合後的單位能與自身的突變體保持競爭力。
為何要讓分離的基因進行超循環組織?
單一大型基因體隨著長度增加,會累積組合爆炸式的突變序列。以 100 個位點為例,就有一錯誤突變體 100 個、二錯誤突變體 4950 個、三錯誤突變體 161 700 個,依此類推。超過誤差閾值後,無錯誤複製便不可能實現。超循環組織分散了資訊,並允許在突變模組之間進行選擇,減輕了維護單一長基因體的負擔。
極限與改進
超循環組織的極限包括:易受寄生體侵害、總資訊量受誤差閾值限制,以及分離基因之間協調緩慢或效率低落。所提出的改進或過渡方式包括:更緊密的结构整合、區室化,以及演化出能確保合作基因共同分離的單一基因體。
更高階催化耦合
更高階催化耦合發生於超循環催化其他超循環之時。這將整合延伸到單一循環之外,卻也帶來新的寄生、協調與穩定性挑戰。在轉譯耦合的超循環中,將複製與多肽合成耦合會引入複合物形成與結合常數;低濃度與高濃度極限以及飽和動力學,會改變同樣的整合與寄生限制。
寄生耦合超循環環支持一個不回饋催化助力的寄生節點,虛線箭頭則顯示一個超循環催化第二個超循環。插圖中的濃度單純形標示了寄生體主導與超循環成員主導的角點不動點,以及入侵閾值 c