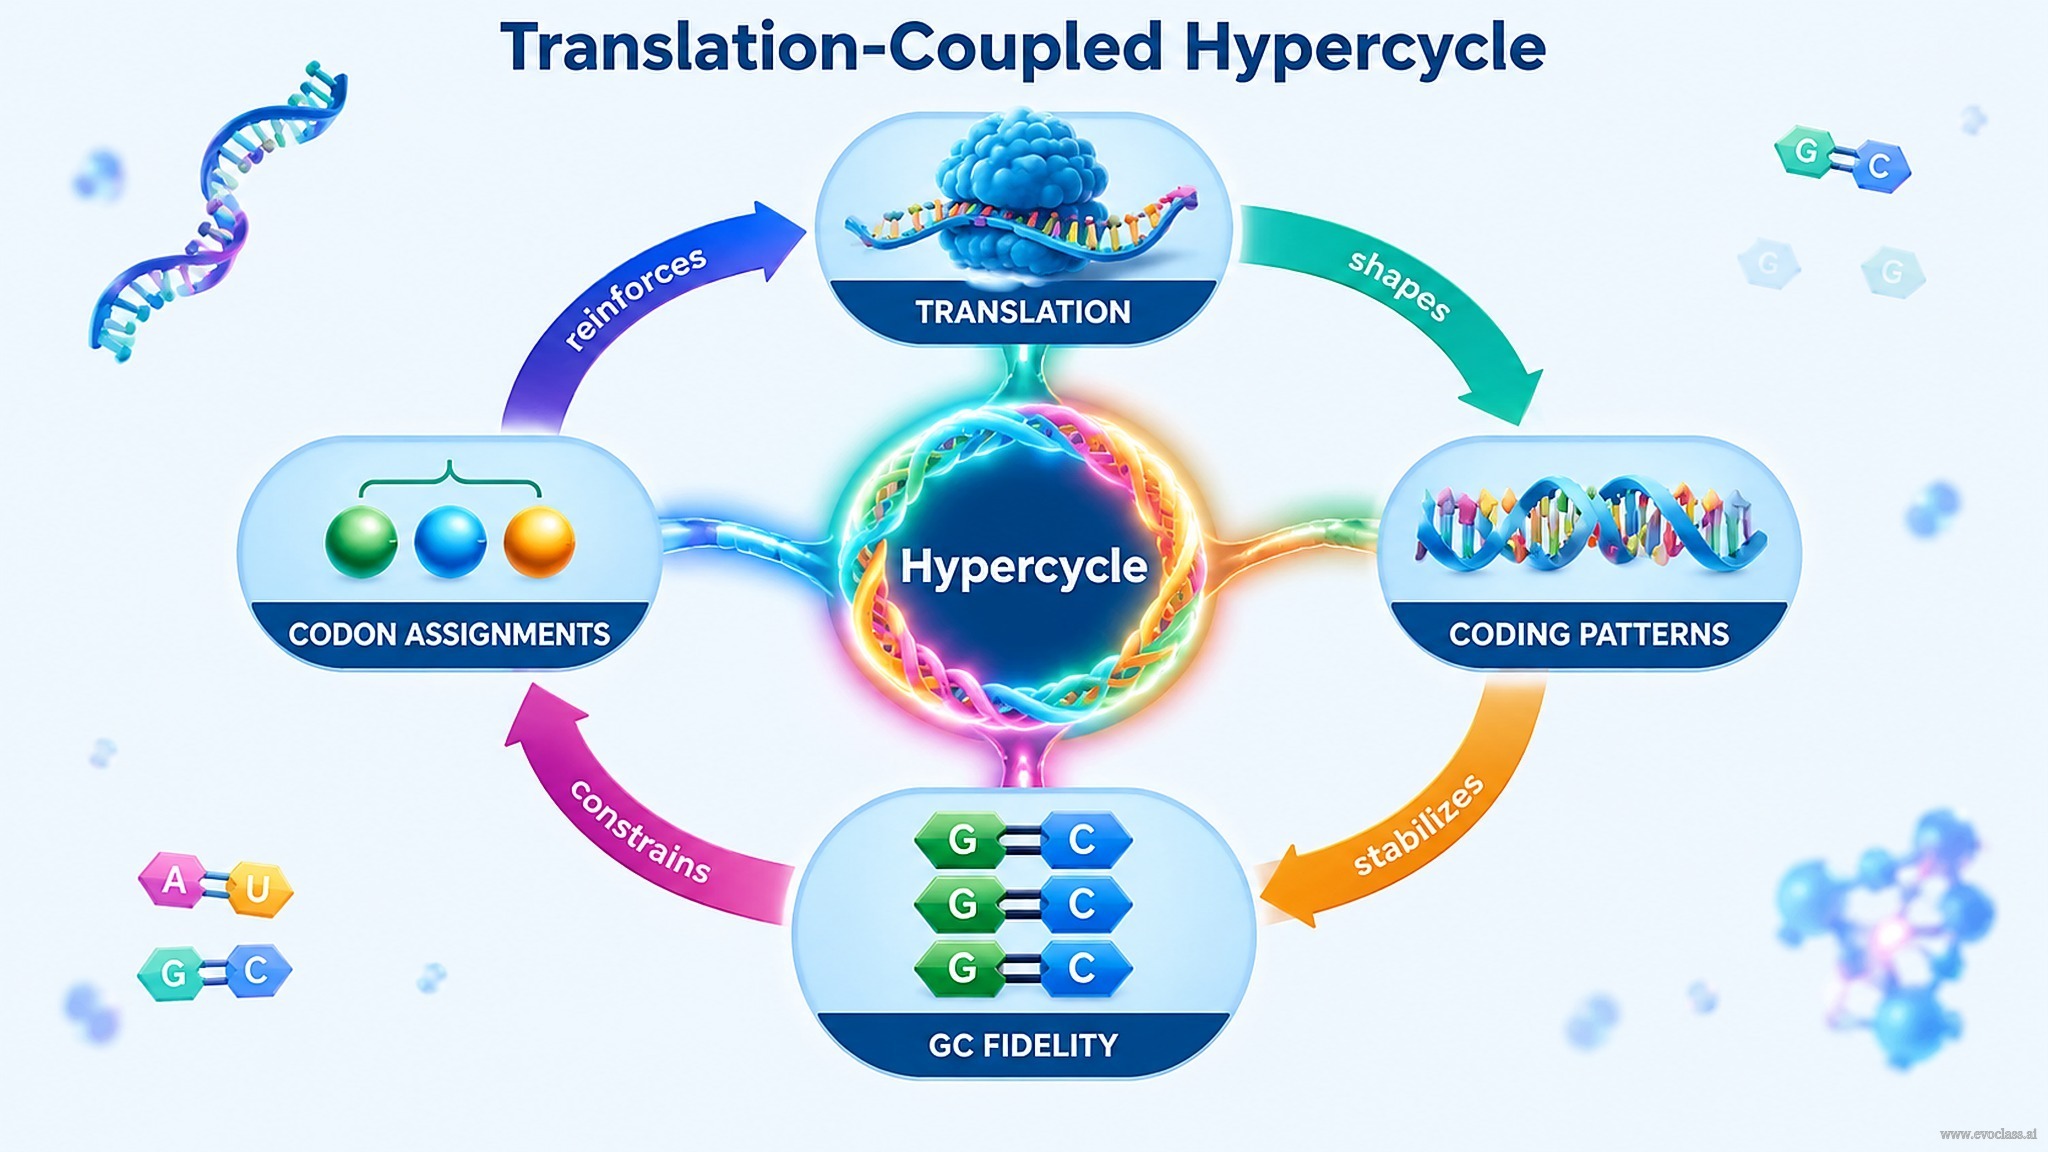
本頁將三條原本各自獨立的研究脈絡整合為一個連貫的前生命情境: 轉譯耦聯超循環動力學、 原始編碼邏輯,以及 富含 GC 的 RNA 化學。這項綜合顯示,一個符合現實的超循環無法僅靠共用的複製與轉譯項組裝而成;它需要 RNA 編碼功能之間形成封閉的催化連結。
從衰減的集合體到封閉的催化連結
一個最小方案——由一組 RNA 股編碼一個複製酶與四個合成酶功能——說明了這個問題。當複製與轉譯項被共用時,它們會塌縮成單一共同的生長函數,因此集合體會因內部競爭而衰減。所缺少的成分是一個 封閉的催化連結:每個 RNA 編碼功能都必須對其他功能的複製或轉譯有所貢獻,使整體得以作為超循環持續存在,而非成為一群相互競爭的模板。
原始編碼與無核糖體讀出
原始編碼必須解決讀框一致性、無逗號讀出以及無核糖體肽轉移。原始訊息可透過類 tRNA 接頭來讀取,這些接頭會在 hf 與 FH 組態之間切換(參見圖 49)。活性組態的認定取決於該類 tRNA 分子是攜帶胺基酸,還是附著於延伸中的肽鏈。將胺基酸轉移至肽鏈會使接頭從 hf 翻轉為 FH,讓讀出得以在無需精密轉譯機器的情況下持續進行。五鹼基對的反密碼環接觸與兩種環構形,使延伸中的肽醯-tRNA 維持附著於訊息上。讀框一致性與無逗號解碼確保讀出保持在正確讀框,不會塌縮為重疊或替代的閱讀框。
富含 GC 的化學與早期密碼子指派
富含 GC 的序列提供更高的雙股穩定性與保真度,使其可能成為最初可重現的接頭與訊息之前驅物。AU 的不完美之處日後可引入具選擇相關性的變異。早期密碼子指派,例如 GGC/GCC 以及隨後的 GAC/GUC 步驟,是透過物理化學與核苷酸豐度來解釋,而非透過完全現代的轉譯機器。具有選擇性優勢 AU 不完美之處的非週期性 GC 晶格,以及初級胺基酸字母表背後的结构性判準,共同完善了這幅圖像。
這些脈絡並非彼此獨立的創新。編碼模式約束了類轉譯的轉移,類轉譯的轉移需要催化性封閉,而富含 GC 的化學則為兩者設定了穩定性門檻。由此產生的情境將轉譯的起源與遺傳密碼的起源視為彼此耦聯的分子問題。
轉譯與原始編碼的綜合這張概念圖整合了 RNA 編碼功能之間的封閉催化連結、具讀框一致性與無逗號讀出的原始編碼、透過 hf/FH 接頭翻轉的無核糖體肽轉移、富含 GC 的保真度與穩定性,以及如 GGC/GCC 等早期密碼子指派。箭頭表示轉譯、編碼與超循環組織之間的相互約束與回饋。