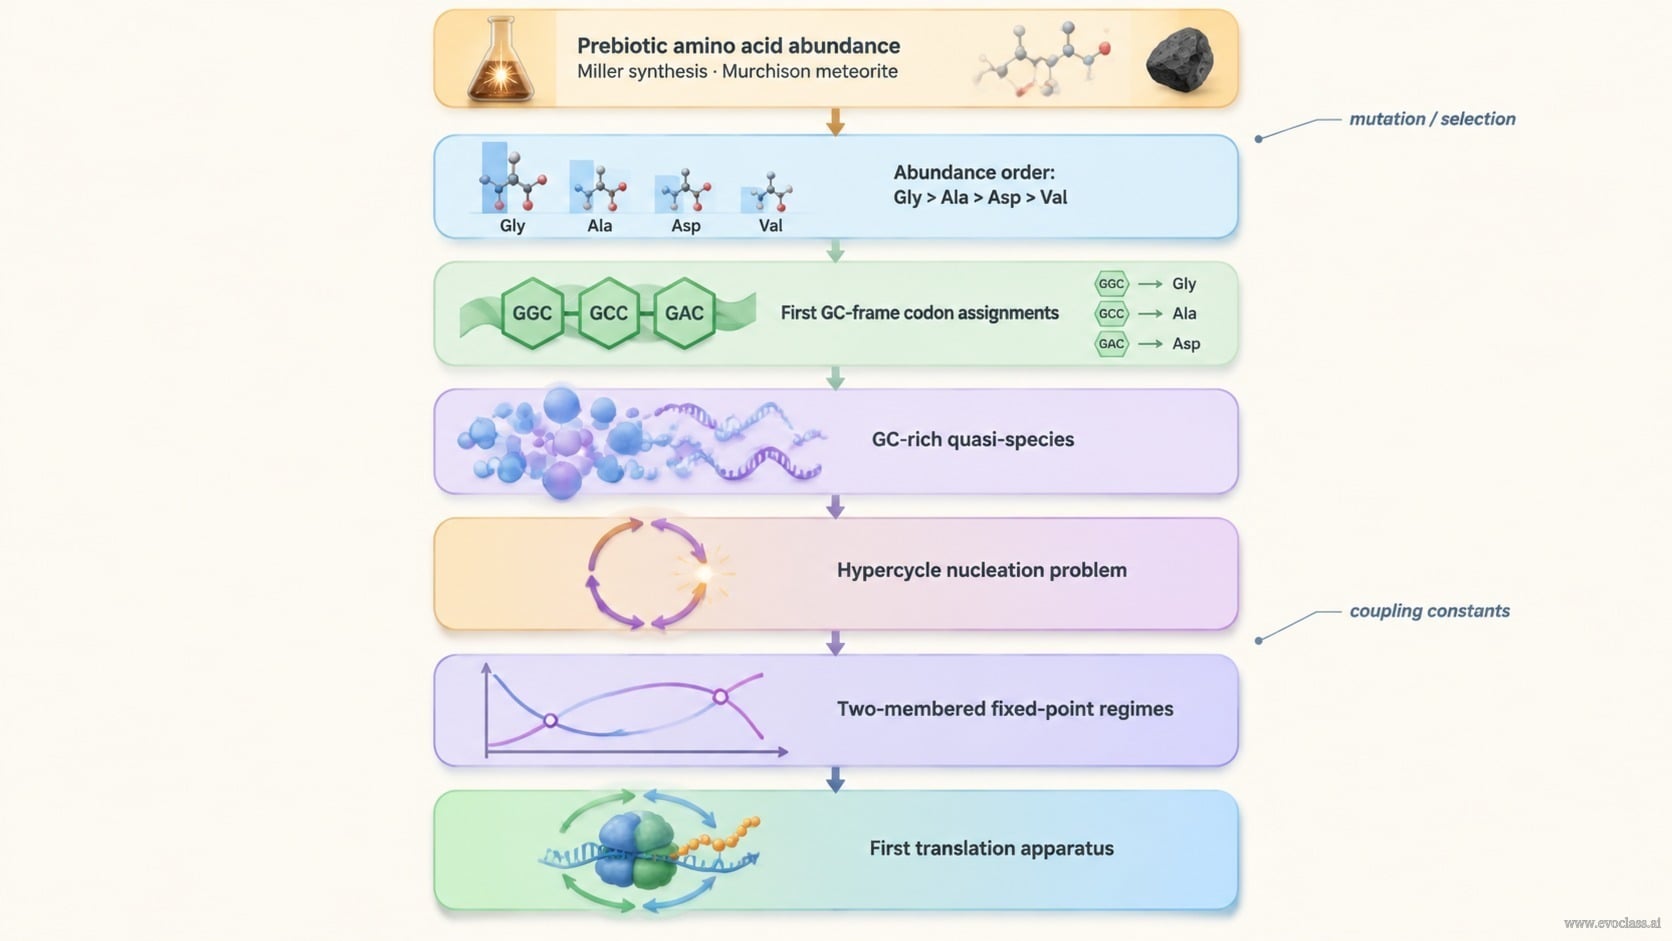
談到轉譯的起源,人們通常會想像核糖體突然組裝而成。本投影片採取不同的思路:它從 前生命時期胺基酸的豐度 出發,探討首個轉譯機制必然隸屬於何種更高階的組織。
從前生命化學到首套字母表
模擬前生命合成(米勒型實驗)與默奇森隕石的有機物清單,共同指向一個有限的 脂肪族胺基酸族。這些產率與隕石豐度並非平均分布,而是有明顯的偏態:以甘胺酸為主,其次為丙胺酸、天門冬胺酸和纈胺酸。這種偏態正是首套遺傳字母表得以取材的原料。
豐度順序與首批 GC 框架密碼子
此順序 Gly > Ala > Asp > Val 被用來排列首批 GC 框架密碼子的配對。由 G 與 C 組成的密碼子,會優先對應到最簡單且最豐富的胺基酸,使化學豐度與早期編碼模式彼此呼應。就此觀點而言,最早期的編碼系統是一個富含 GC 的系統,而其配對結果是可取得性的必然產物,而非偶然。
超循環的成核問題
超循環的運作方式與單一自催化複製子不同。單一複製子原則上能從一份模板複本起步;但環狀網絡做不到,因為要閉合迴路,所有成員必須同時存在。因此,首個轉譯機制並非一項孤立的分子發明。它必須從富含 GC 的準物種中逐步組裝而成,靠突變與選擇一步步增添並改良其組件,直到迴路閉合。
雙成員超循環的固定點
對雙成員超循環的固定點分析顯示,其結果取決於連結各成員的 相對耦合常數 。會出現三種質性機制:直接競爭,即其中一個成員勝過另一個;擇一成員的選擇,取決於初始條件;以及相互超循環穩定化,即每個成員都強化對方。唯有最後一種機制能支持與轉譯耦合的機制,因為在這種情況下,RNA 複製與肽合成會彼此增強,而非相互競爭。
轉譯是門檻,而非發明
由此浮現的圖像是:首個轉譯機制是 超循環系統中的一道門檻 連結了 RNA 複製、肽合成與催化閉環。其引導性問題是 XI. 轉譯如何起步? 上方的路線圖給出了答案:起點是化學豐度,終點則是透過突變、選擇與充分耦合所達成的自我強化迴路。
關鍵區別
單一自催化複製子能從一份模板複本成核;超循環則不能。因此,超循環的首次出現是漸進的,是從富含 GC 的準物種中浮現,而非來自單一分子。
前生命胺基酸與首個轉譯機制一幅分階段的路线图将原始胺基酸丰度(米勒型合成与默奇森陨石资料)与首个转译机制串联起来。它依序经过丰度顺序 Gly > Ala > Asp > Val、最早期的 GC 框架密码子配对、富含 GC 的准物种、超循环的成核问题,以及双成员循环的固定点机制,最终抵达由 RNA 复制、肽合成与催化闭环共同维系的首个转译机制。
前生命胺基酸與首個轉譯機制
一幅分階段的路线图将原始胺基酸丰度(米勒型合成与默奇森陨石资料)与首个转译机制串联起来。它依序经过丰度顺序 Gly > Ala > Asp > Val、最早期的 GC 框架密码子配对、富含 GC 的准物种、超循环的成核问题,以及双成员循环的固定点机制,最终抵达由 RNA 复制、肽合成与催化闭环共同维系的首个转译机制。