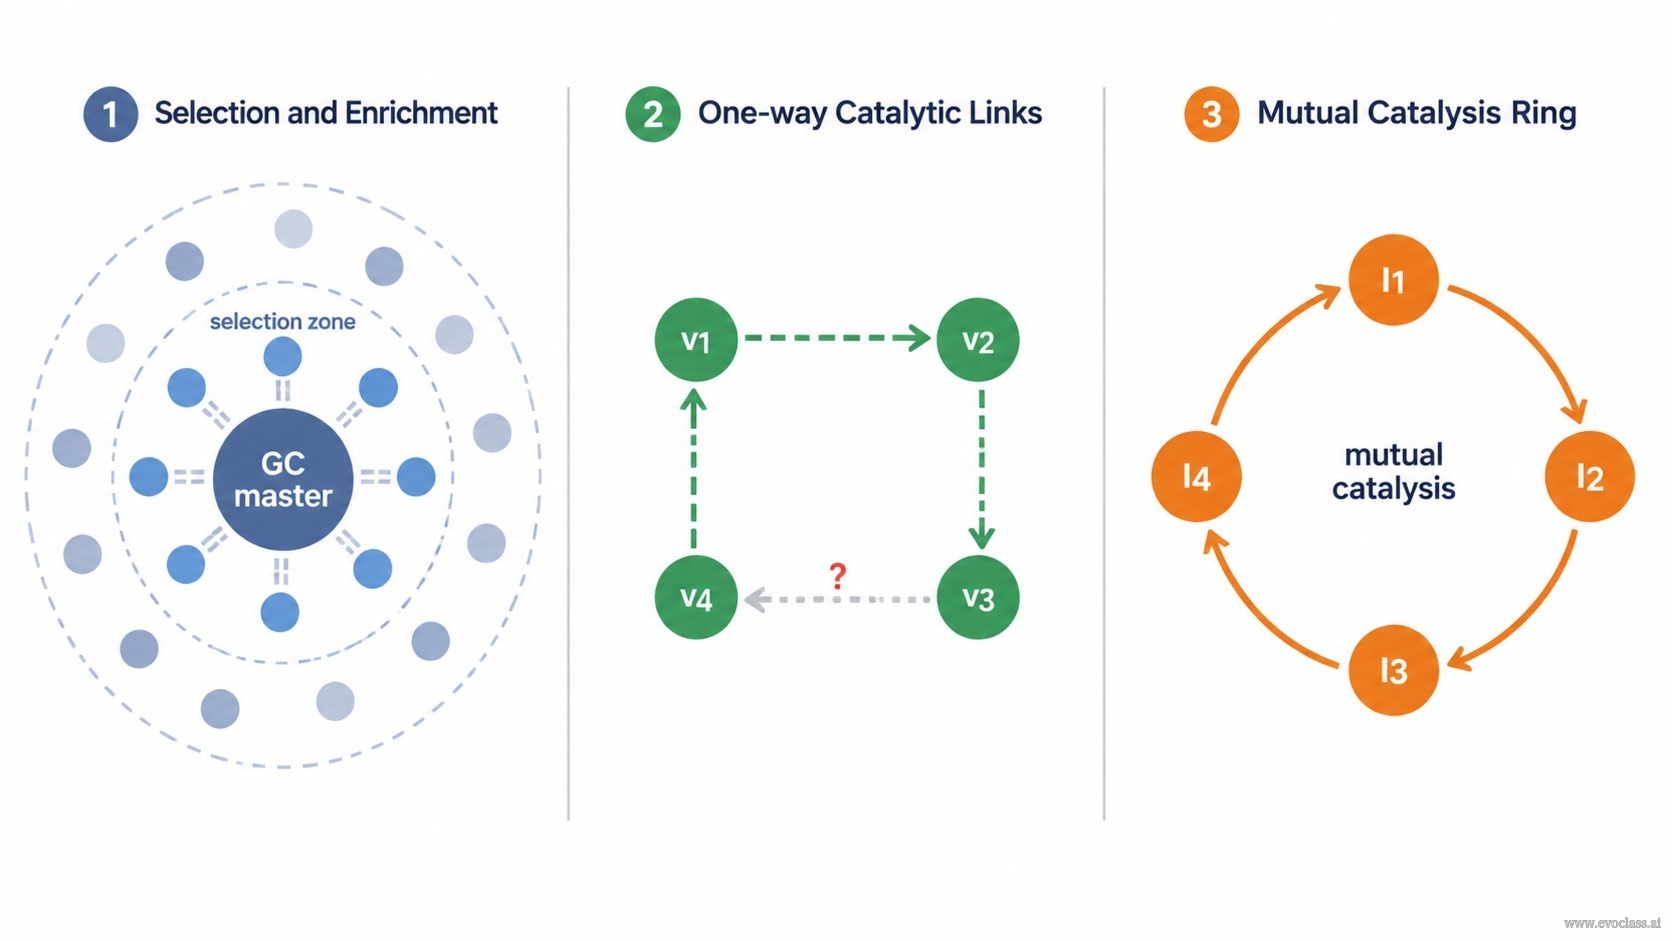
超循環 是一組封閉的複製子,它們彼此催化對方的複製。由於這個循環是由 相互 催化所定義——涉及數條不同的序列——它無法從單一模板複本成核:一個分子並不包含完整的循環功能,而它的第一個複本也沒有任何催化夥伴可以與之閉合成環。因此,超循環組織不可能突然出現;它必須在族群的層級上逐步組裝起來,而最可能的搖籃便是富含GC的準物種。
為何單一模板無法啟動一個循環
自催化複製子是自給自足的:一條能為自身複製提供模板的單股鏈,能由一個分子開始呈指數成長,因為該分子與其產物具有相同的功能。超循環並非如此。它的定義性特徵是一個 封閉的催化支援迴路 其中成員 i 增強成員 j 的複製,成員 j 增強 k,如此依序進行,直到迴路回到 i。只要移除任何單一成員,其餘成員便無法再生成它。因此,任何一個成員的第一個複本都是死路:它沒有互補的夥伴,也不存在任何封閉的催化循環能優先地擴增它。
富含GC的準物種提供原料
準物種並不是單一序列,而是由突變相連、圍繞著一個居於主導地位的類主序列所分布的一團相關序列。在富含GC的池中,這團序列的儲備格外充足。每多一對G–C就多貢獻一個氫鍵,因此富含GC的莖區在較高溫度下才會熔解、摺疊得更可靠,並且在二級結構瓦解之前能容忍更多點突變。因此,這個儲備庫同時具備了成核問題所需的兩項條件:一是有高度的局部多樣性,變異體具有改變的環、莖與表面幾何;二是有足夠的結構穩定性,使個別變異體能維持功能足夠久,以便接受選擇的檢驗。
突變探索耦合,選擇將其保留
突變式的探索才是真正在搜尋交互作用空間的機制。一個點替換就能重塑髮夾結構、暴露出新的結合表面,或招募依賴金屬離子的催化中心,從而改變弱耦合係數
從準物種組織到超循環組織
隨著連結累積,突變體分布也改變了形狀。多樣性不再圍繞單一主序列散布,而是凝聚向一小群相互催化的模板;唯有當連結數量足夠、使網絡得以閉合而非僅是開放或分支時,環閉合才會發生。閉合之前,這個集合體的表現像一個帶有若干相關變異體的準物種。閉合之後,成長具有合作性與超加成性:循環作為一個單位進行增殖,而且由於每個成員都餵養下一個成員,這個耦合集合能勝過與其爭奪相同單體與複製酶的孤立準物種。這便是超循環如何在沒有任何預先形成的多基因基因組之下出現的方式——藉由招募與整合早已存在於富含GC儲備庫中的突變基因。針對雙成員情形的底層不動點分析,以速率係數的形式表達了相同的觀點:這一對最終是走向競爭排除、其中一個成員被選擇,還是穩定的超循環共存,僅取決於自我增強與相互增強的相對大小,而此判準可推廣至三成員與 n 成員循環。
當這條路線失敗時
- 複製保真度 必須維持在錯誤閾值之上。若突變率過高,儲備庫便會瓦解為一團瀰散的雲,其中沒有任何變異體能持續足夠久以建立連結。
- 功能相容性 也很重要:成員之間不得破壞性地干擾彼此的摺疊或催化,否則累積的連結會相互抵消,而非彼此強化。
- 寄生者負荷 必須維持在低水準。一個自私的模板若因為新興循環而得以高效複製,卻不回饋任何催化,便會耗盡共享資源,並可能在網絡閉合之前使其失去穩定。
解題示例。 在一個富含GC的RNA池中,一個居於主導地位的類GGC/GCC序列及其突變體構成了一個準物種。某個突變體可能弱弱地協助鄰近序列的複製,而選擇會同時保留這兩個夥伴,因為它們的聯合產量超過任何一方單獨所能達到的水準。進一步的突變會產生相互協助,原本缺失的那條分支被補上,於是雙成員或更大的循環便閉合了。一旦閉合,超循環式的成長便會勝過孕育它的孤立準物種。
從富含GC的準物種中湧現三個階段由左至右閱讀。首先,一個富含GC的主序列位於突變雲的中心,內部的選擇區標示出逐步被富集的變異體,而穩定的GC鹼基配對則保護它們的摺疊結構。其次,存活的變異體由弱的單向催化連結相連,其中一條連接仍以虛線表示,因為網絡尚未閉合。第三,這些連結變成相互的,網絡閉合成一個超循環環,其中每個成員催化下一個成員,因此整個集合能勝過孤立的準物種。