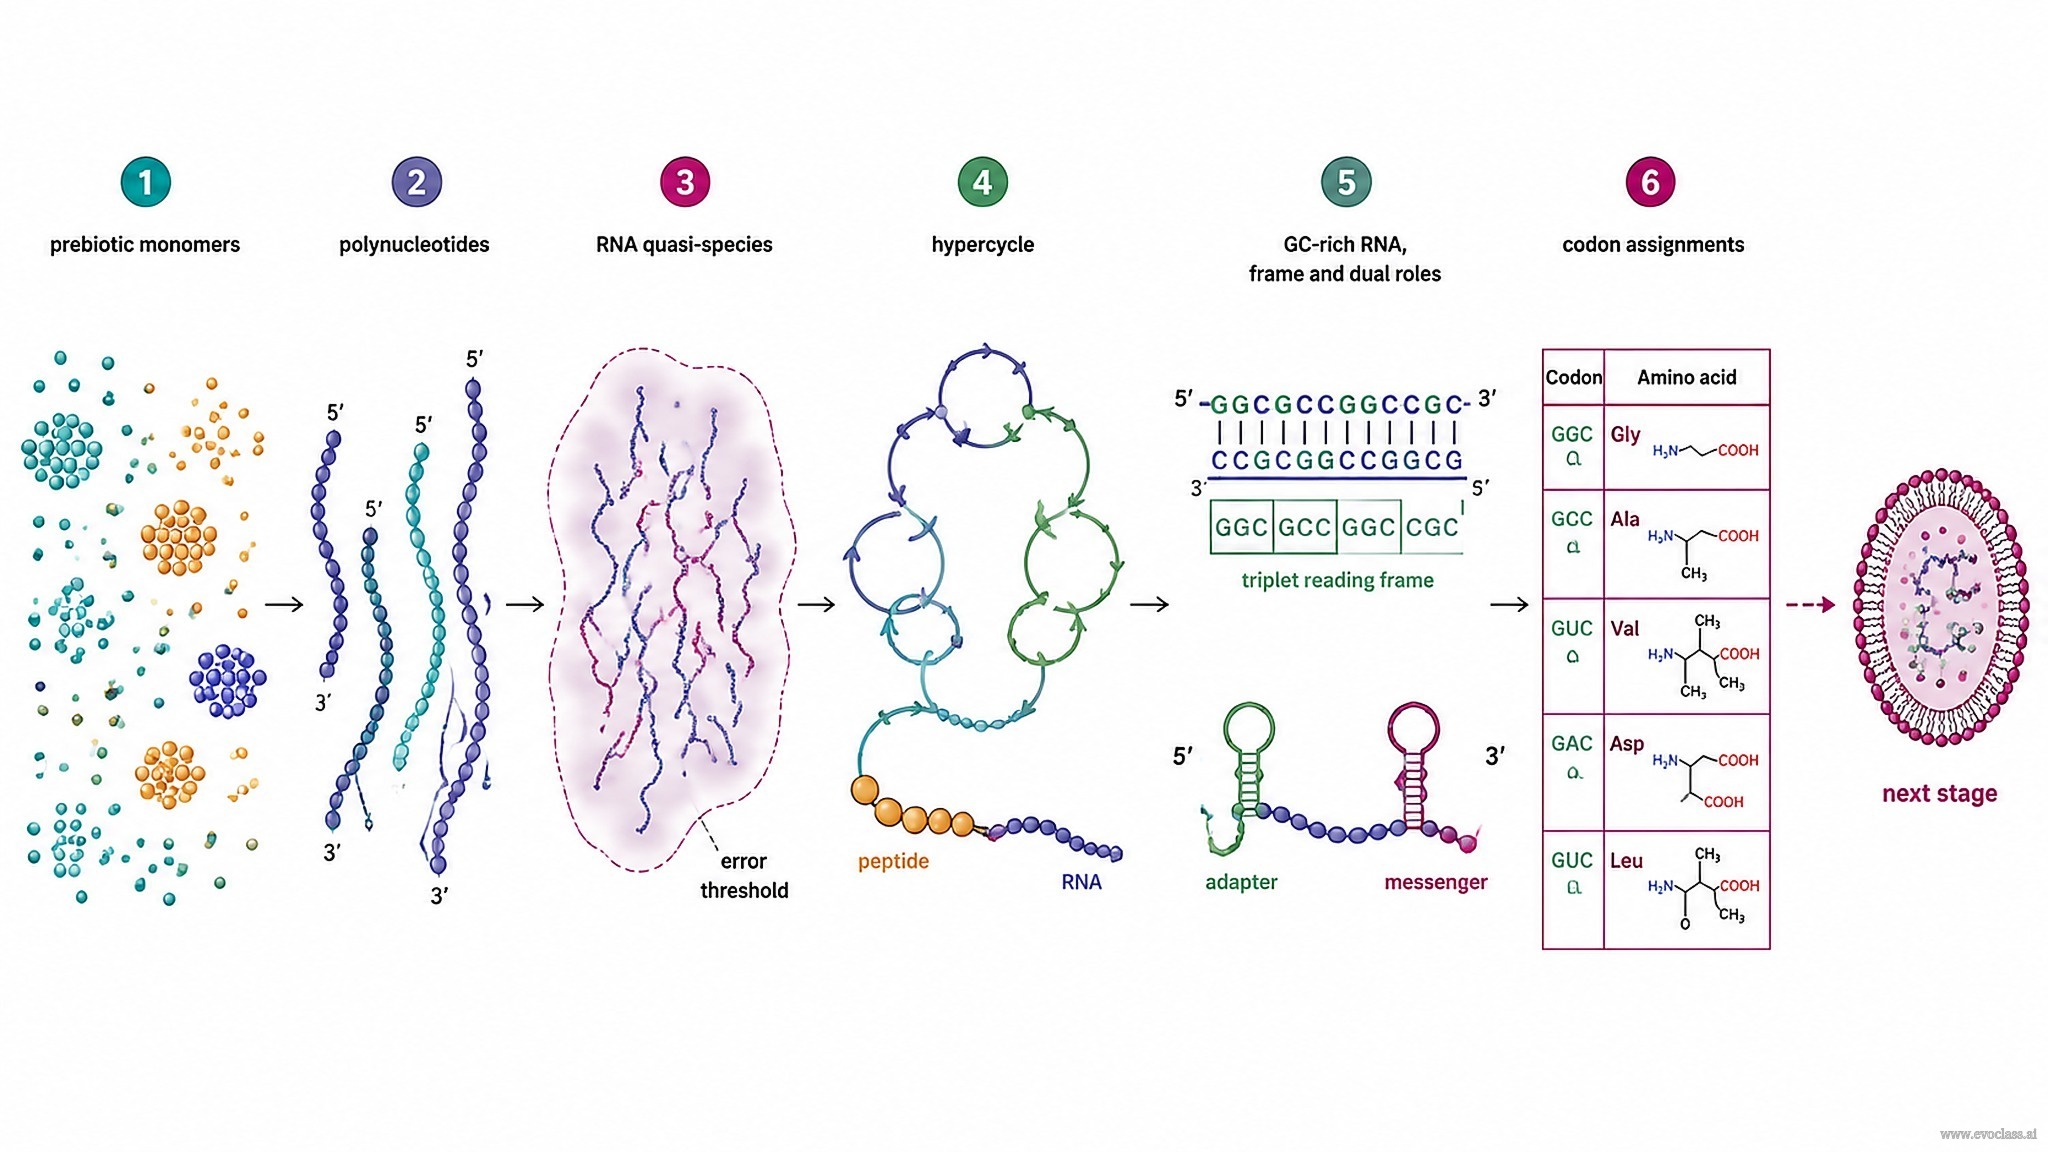
本頁彙整了所提出的 從前生命巨分子到最初密碼子指派的連續性。這裡的主張並非某個單一事件造就了遺傳密碼,而是一連串物理與資訊層面的步驟逐步縮小了可能指派的空間,直到僅剩下一組規模小且可行的三元體對應胺基酸之映射。
1. 非隨機的起始池
前生命合成過程並不會產生均勻的混合物。胺基酸與核苷酸的累積具有強烈的 非隨機豐度,而這些偏差會向上傳遞:凡是數量充足且能持久存在的單體,才是真正能被最早期的編碼交互作用所捕捉的對象。決定最初選擇清單的是可用性,而非最佳化,任何指派都必須從這份清單中產生。
2. 聚核苷酸是準種,而非單一分子
早期的聚核苷酸並非以單一最佳化序列的形式演化,而是以 準種的形式存在:一群在突變—選擇平衡下維持的相關變異體雲。其資訊含量受錯誤閾值所限制——若每個位點的突變率過高,主序列便會瓦解為平坦且缺乏資訊的突變體分布。複製保真度低亦會帶來突變負荷,抑制較長分子的維持。因此,早期編碼是從受錯誤閾值限制的短序列開始,而非從長的原初基因組起步。
3. 功能性耦合與超循環組織
將 RNA 催化作用與胜肽功能耦合,可讓原本相互競爭的複製者彼此扶持。 超循環組織 是所提出用以整合這些功能並回應標準質疑的方式:成核(循環究竟如何開始)、寄生者(剝削循環卻毫無貢獻的較短物種),以及資訊流失。耦合在任何基因組存在之前,便已穩定類編碼的交互作用。
4. 形塑早期編碼的限制條件
- 富含 GC 的複製 使可及的序列空間偏向富含 G/C 的模板。
- 無逗點閱讀框架 可避免移碼歧義,因此唯有特定的三元體密碼能在無分隔符的情況下被讀取。
- 雙重用途 RNA:同一分子既可作為攜帶胺基酸的銜接子,又可作為被讀取的信使,因此任何指派都必須同時滿足這兩種角色。
5. 最初的指派與後續路徑
在這些限制條件下,最早的密碼子指派合理推測涉及類 GGC/GCC 三元體,對應到 含量相對豐富的脂肪族胺基酸。這項轉變是漸進的過程,而非跳躍:它先預設了受錯誤閾值限制的資訊與催化閉環,之後才出現區隔化,將基因組統合於單一邊界之內,並形成整合的原細胞。
模型狀態
本論述所界定的是合理的路線與限制條件,而非決定論式的歷史序列。密碼子指派是通往區隔化超循環與整合原細胞途中的一個湧現性、受限制條件約束的步驟;能滿足相同限制條件的其他指派方式仍屬可能。
總結目標: 能夠複述所提出的事件順序——巨分子與準種,接著是密碼子指派,然後是區隔化超循環,最後是整合的原細胞。
從巨分子到密碼子指派一條線性的連續性路徑:非隨機的前生命單體池供養聚核苷酸池,後者在受錯誤閾值所限的突變—選擇平衡下以 RNA 準種的形式持續存在。功能性 RNA—胜肽耦合與超循環組織接著支持富含 GC 的無逗點閱讀框架,其中包含雙重用途的銜接子與信使,最初的密碼子指派便由此浮現——而區隔化超循環、整合的原細胞與統一的基因組則標示為下一階段,而非此步驟的一部分。
從巨分子到密碼子指派
一條線性的連續性路徑:非隨機的前生命單體池供養聚核苷酸池,後者在受錯誤閾值所限的突變—選擇平衡下以 RNA 準種的形式持續存在。功能性 RNA—胜肽耦合與超循環組織接著支持富含 GC 的無逗點閱讀框架,其中包含雙重用途的銜接子與信使,最初的密碼子指派便由此浮現——而區隔化超循環、整合的原細胞與統一的基因組則標示為下一階段,而非此步驟的一部分。