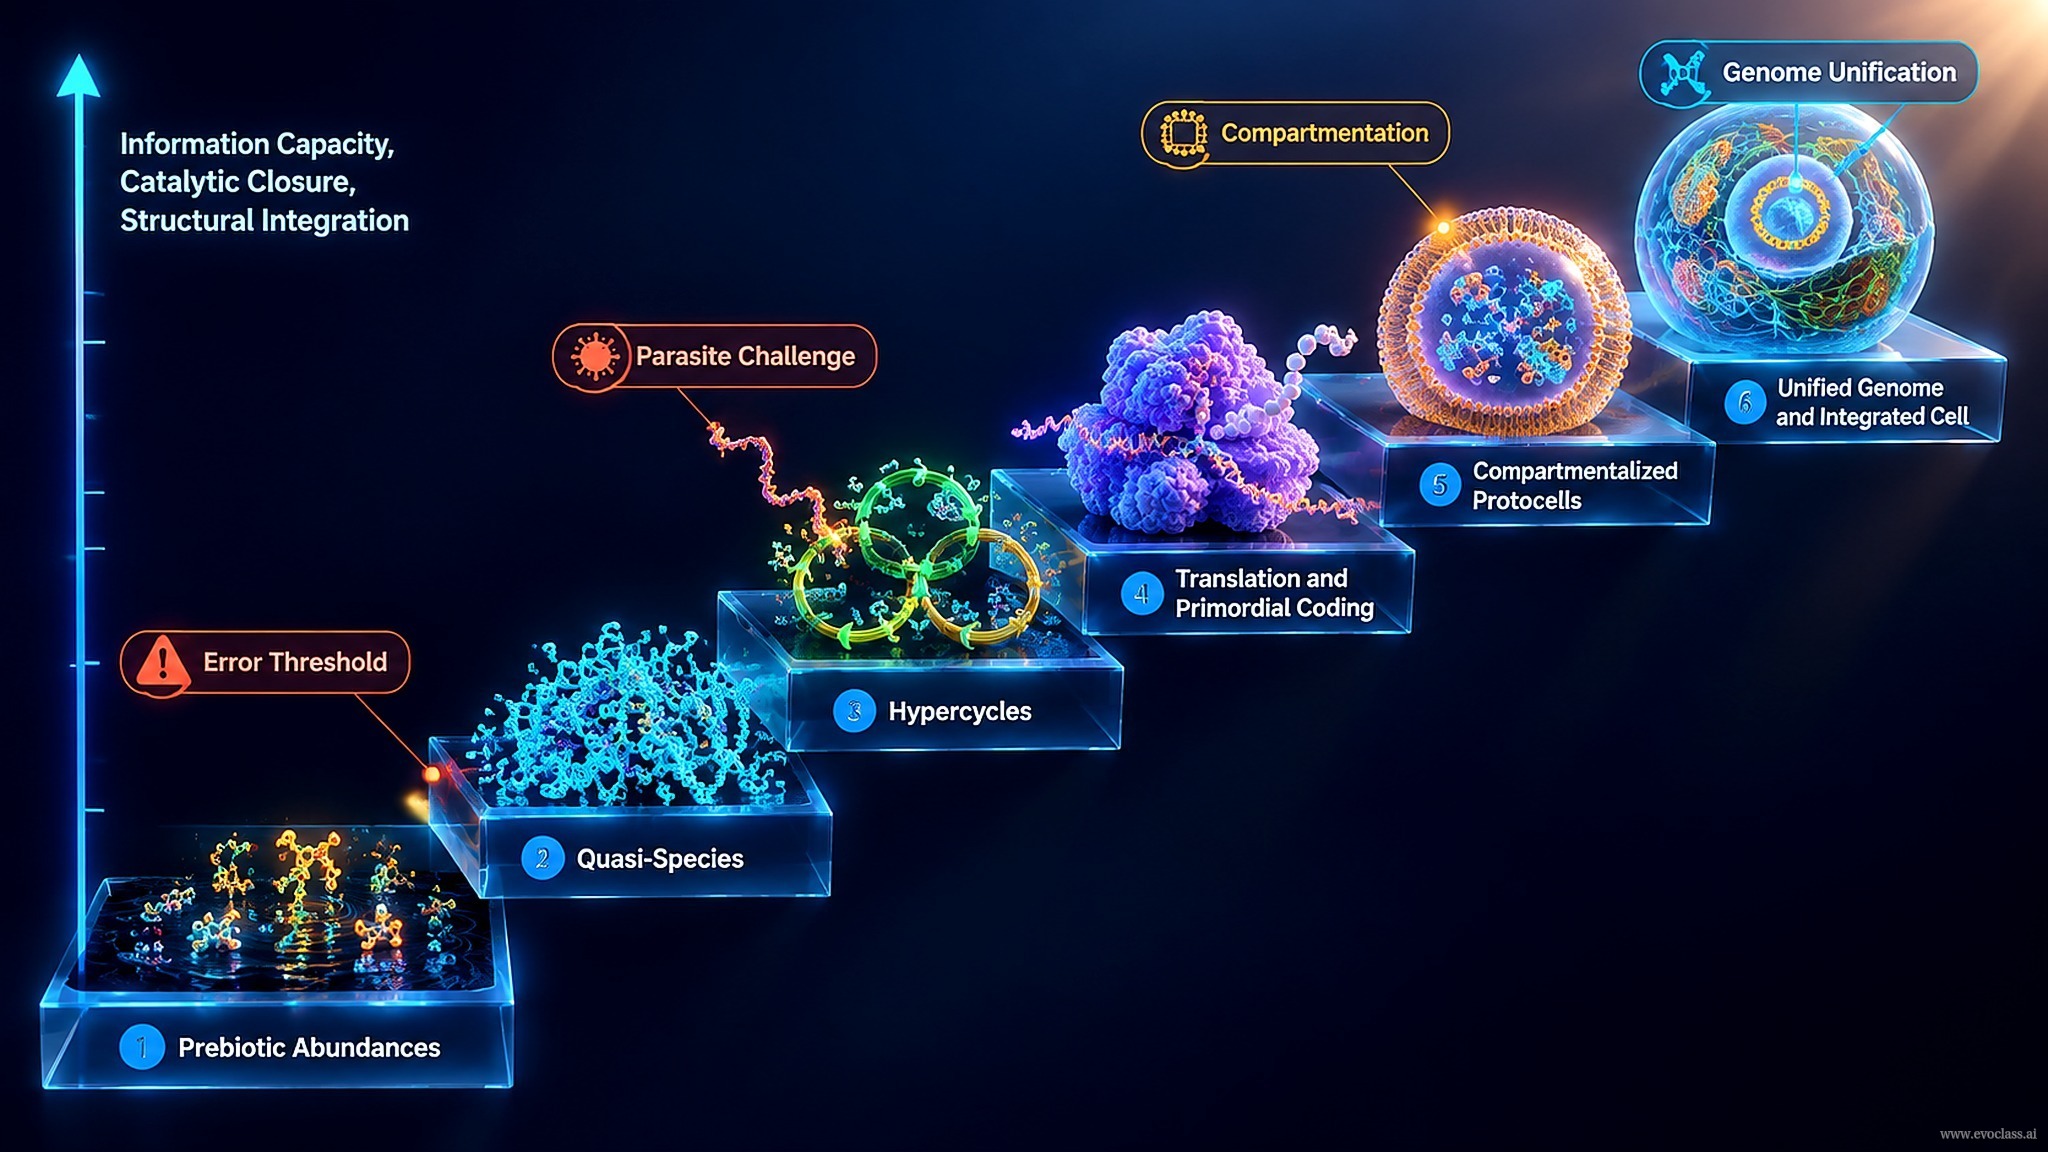
整合細胞並非獨立於生命起源之外的另一開端,而是分子自組織持續、分階段延伸的終點。每一個階段都解決特定的資訊、催化或寄生問題,而達爾文式選擇在分子層面上持續運作。
- 階段 1 — 前生命原料: 前生命合成產生具有非隨機豐度的胺基酸與多核苷酸;諸如富含 GC 的複製等組成偏差,限制了最早的複製子。
- 階段 2 — 準物種: 突變與選擇產生準物種族群,其穩定資訊含量受複製保真度與錯誤閾值所限制;q̄m、σm 與 vm 可預測資訊的流失或維持。
- 階段 3 — 超循環整合: 催化、自催化與超循環耦合將複製子連結成具一致性生長的合作循環;寄生者、突變負荷與成核失敗界定了超循環組織的極限。
- 階段 4 — 轉譯與原始編碼: RNA 接頭/信使、無逗號框架、早期 GGC/GCC 密碼子以及無核醣體的胜肽轉移,將超循環延伸至可編碼的功能性多肽。
- 階段 5 — 區室化: 區室化的超循環與原生細胞將耦合的複製與轉譯侷限於局部、抑制寄生剝削,並在現實邊界條件下創造出更高層次的選擇單位。
- 階段 6 — 基因組統一: 多個超循環複製子被整合為單一整合基因組;DNA 校對、重組與提升的保真度改變了錯誤閾值,並允許更大的整合細胞出現。
連續性原理: 這些轉變並非各自獨立的起源,而是催化閉合、資訊容量與結構整合的逐步提升;錯誤災變、寄生剝削與聯合功能失效等失敗模式,標誌著後續階段必須跨越的邊界。
結合選擇理論的形式化綜合: 不動點與雅可比分析、極限環、Hopf 分岔與耦合機制,描述了整合何時穩定、何時崩解。Qβ 噬菌體誘變說明了突變體分布與錯誤閾值,而句子演化賽局則顯示保真度如何限制資訊;DNA 校對與重組隨後放寬了此一限制,有助於解釋統一基因組如何從較早的 RNA/蛋白質超循環中產生。
從多核苷酸到整合細胞的連續性從前生命豐度到統一基因組的六階段階梯圖,縱軸向上代表資訊容量、催化閉合與結構整合的增長;標註則指出錯誤閾值、寄生者挑戰、區室化與基因組統一。
從多核苷酸到整合細胞的連續性
從前生命豐度到統一基因組的六階段階梯圖,縱軸向上代表資訊容量、催化閉合與結構整合的增長;標註則指出錯誤閾值、寄生者挑戰、區室化與基因組統一。